2.1 Algemene demografische gegevens
In dit hoofdstuk wordt een overzicht gegeven van de algemene demografische gegevens van zowel de humane- als de dierpopulatie in Nederland in 2025 als relevante achtergrond bij het vóórkomen van zoönosen.
2.1.1 Bevolking
De totale Nederlandse bevolking bestond in 2025 uit ongeveer 18 miljoen mensen. De groei ten opzichte van eerdere jaren zet zich door. De groei wordt door migratie positief, aanwas door geboorte is negatief doordat meer mensen overleden dan dat er geboren werden in 2025. Vrouwen vormen net als in (de meeste) voorgaande jaren een kleine meerderheid (Tabel 2.1.1 en 2.1.2). De gemiddelde leeftijd van de Nederlandse bevolking is in 2025 weer iets gestegen van 42,6 tot 42,8 jaar.
Tabel 2.1.1 Nederlandse bevolking naar geslacht en leeftijd op 1 januari 2025 (Bron: (Centraal Bureau voor de Statistiek))
| Bevolking | Verdeling | Aantal | % |
|---|---|---|---|
| Bevolking naar geslacht | Totaal | 18.044.027 | |
| Mannen | 8.978.451 | 49,8 | |
| Vrouwen | 9.065.576 | 50,2 | |
| Bevolking naar leeftijd | 0 tot 20 jaar | 3.719.481 | 20,6 |
| 20 tot 40 jaar | 4.747.163 | 26,3 | |
| 40 tot 65 jaar | 5.821.704 | 32,3 | |
| 65 tot 80 jaar | 2.823.384 | 15,6 | |
| 80 jaar of ouder | 932.295 | 5,2 |
Tabel 2.1.2 Nederlandse bevolking tot 1 januari 2025 (Bron: CBS)
| Bevolking per jaar | 2021 | 2022 | 2023 | 2024 | 2025 |
|---|---|---|---|---|---|
| Mannen | 8.68.6536 | 8.745.468 | 8.850.309 | 8.920.768 | 8.978.451 |
| Vrouwen | 8.788.879 | 8.845.204 | 8.960.982 | 9.022.174 | 9.065.576 |
| Totale bevolking | 17.475.415 | 17.590.672 | 17.811.291 | 17.942.942 | 18.044.027 |
2.1.2 Gezelschaps- en landbouwhuisdieren
Gezelschapsdieren vormen een onderdeel van onze leefomgeving. Het is gebleken dat ze een positieve invloed hebben op de geestelijke en lichamelijke gezondheid van de eigenaar. Ruim de helft van de Nederlandse huishoudens heeft één of meerdere huisdieren. Cijfers over het aantal huisdieren worden niet officiëel bijgehouden, maar er zijn een aantal databronnen waardoor een goede schatting mogelijk is (Tabel 2.1.3). De aantallen reptielen en vissen lijken significant verminderd te zijn vergeleken met 2023, de reden is niet bekend.
Tabel 2.1.3 Geschat aantal huisdieren in Nederland (x 1.000.000, bronnen: Dibevo, Faculteit Diergeneeskunde, HAS Hogeschool Den Bosch)
| Diercategorie per jaar | 2014* | 2023# | 2025# |
|---|---|---|---|
| Honden | 1,5 | 1,8 | 1,7 |
| Katten | 2,6 | 3 | 3 |
| Konijnen | 1,2 | 0,4 | 0,3 |
| Knaagdieren | 0,5 | 0,3 | 0,3 |
| Reptielen | 0,6 | 0,5 | 0,15 |
| Vissen (aquarium en vijver) | 18 | 13,5 | 10,5 |
| Zang- en siervogels | 3,9 | 1,4 | 1,5 |
| Postduiven | 5 | - | - |
Met uitzondering van bedrijven met kippen neemt het aantal bedrijven met landbouwhuisdieren verder af (Tabel 2.1.4). Met name de daling van het aantal varkensbedrijven (18%) valt op. In Tabel 2.1.5 staan de aantallen landbouwhuisdieren vermeld.
Tabel 2.1.4 Aantal agrarische bedrijven (bron: CBS)
| Diercategorie per jaar | 2016 | 2017 | 2018 | 2019 | 2020 | 2021 | 2022 | 2023 | 2024 | 2025 |
|---|---|---|---|---|---|---|---|---|---|---|
| Varkens | 4.505 | 4.300 | 4.135 | 4.090 | 3.560 | 3.410 | 3.273 | 3.186 | 3.070 | 2.510 |
| Runderen, totaal | 26.630 | 26.260 | 25.393 | 24.610 | 24.020 | 23.530 | 22.906 | 22.478 | 21.960 | 21.240 |
| Melk- en kalfkoeien | 17.909 | 18.060 | 16.963 | 16.260 | 15.730 | 15.250 | 14.729 | 14.729 | 13.880 | 13.360 |
| Vleeskalveren | 1.860 | 1.570 | 1.227 | 1.675 | 1.670 | 1.620 | 1.584 | 1.451 | 1.450 | 1.360 |
| Schapen | 8.515 | 8.430 | 8.396 | 8.368 | 8.280 | 8.250 | 8.193 | 7.960 | 7.940 | 7.620 |
| Geiten | 2.658 | 2.660 | 2.972 | 3.043 | 3.050 | 3.190 | 3.198 | 3.317 | 3.310 | 3.230 |
| Vleeskuikens | 629 | 630 | 535 | 642 | 640 | 620 | 619 | 773 | 620 | 610 |
| Leghennen | 1.015 | 990 | 837 | 867 | 860 | 830 | 833 | 914 | 820 | 780 |
| Paarden/pony's | 8.056 | 8.410 | 8.405 | 7.683 | 7.890 | 8.600 | .a | 7.951 | 8.160 | 8.210 |
Tabel 2.1.5 Aantallen dieren (x1000), aanwezig in Nederland op moment van landbouwtelling (Bron: CBS (deels met bewerking Wageningen Economics Research, (Nederlandse Voedsel- en Warenautoriteit))a
| Diercategorie per jaar | 2016 | 2017 | 2018 | 2019 | 2020 | 2021 | 2022 | 2023 | 2024 | 2025 |
|---|---|---|---|---|---|---|---|---|---|---|
| Vleesvarkens | 5.726 | 5.630 | 4.033 | 5.617 | 5.446 | 5.262 | 5.155 | 4.933 | 4.792 | 4.429 |
| Fokzeugen | 1.157 | 1.159 | 978 | 1.102 | 1.091 | 1.026 | 1.003 | 953 | 860 | 845 |
| Runderen, totaal | 4.245 | 4.069 | 3.945 | 3.810 | 3.838 | 3.821 | 3.834 | 3.846 | 3.772 | 3.638 |
| Melk- en kalfkoeien | 1.743 | 1.694 | 1.552 | 1.577 | 1.593 | 1.571 | 1.571 | 1.574 | 1.543 | 1.527 |
| Vleeskalveren | 956 | 953 | 988 | 1065 | 1071 | 1046 | 1.042 | 957 | 1.010 | 962 |
| Schapen | 783 | 799 | 1.265 | 918 | 890 | 860 | 854 | 665 | 738 | 676 |
| Geiten | 500 | 533 | 651 | 614 | 633 | 643 | 645 | 647 | 636 | 628 |
| Vleeskuikens | 49.188a | 48.237a | 43.242 | 48.684 | 49.228 | 47.056 | 45.903 | 41.000 | 36.373 | 37.397 |
| Leghennen* | 46.209a | 46.442a | 47.747 | 44.319 | 43.165 | 43.160 | 42239 | 43.000 | 35.570 | 36.327 |
| Paarden/pony's | 82 | 86 | 88 | 87 | 90 | 98 | .b | 92 | 102 | 103 |
De gegevens van Tabel 2.1.4 en 2.1.5 zijn afkomstig van het CBS. Voor het aantal leghennen en vleeskuikens zijn vanaf 2015 data van de NVWA gebruikt en in de overige jaren cijfers van CBS. De genoemde aantallen paarden en UBN’s (Uniek Bedrijfsnummer) met paarden zijn verkregen van RVO.
Er is een verschil in de data die gerapporteerd worden door de NVWA en de data door het CBS. De NVWA rapporteert het totaal aantal beschikbare UBN’s, terwijl het CBS de UBN's vermeld met, op het moment van de landbouwtelling, daadwerkelijk aanwezige dieren. Hierdoor kunnen de CBS cijfers afwijken van de cijfers die de NVWA rapporteert naar onder andere de EFSA en de WOAH (voorheen OIE). Omdat vooral de bedrijven met dieren van belang zijn als het gaat om zoönosen, worden in de Staat van Zoönosen, waar mogelijk, de cijfers uit de CBS-data gepresenteerd. De CBS-cijfers kunnen een voorlopig karakter hebben en daarom kan het zijn dat cijfers gerapporteerd in de Staat van Zoönosen van voorgaande jaren afwijken van de huidige cijfers.
Door de methode van registreren van paarden bij RVO, is er kans dat paarden dubbel geteld worden, dat wil zeggen; hetzelfde paard staat dan geregistreerd op meerdere UBN’s, wat de schatting van het totale aantal paarden in Nederland in 2025 bemoeilijkt. Ook zijn er waarschijnlijk paarden (nog) niet geregistreerd of niet afgemeld na overlijden.
In Tabel 2.1.6 staan de aantallen slachtdieren vermeld. De aantallen geslachte dieren zijn afgelopen jaren gestabiliseerd.
Tabel 2.1.6 Aantallen slachtdieren per jaar (x1.000) (Bron: NVWA)
| Diercategorie per jaar | 2016 | 2017 | 2018 | 2019 | 2020 | 2021 | 2022 | 2023 | 2024 | 2025 |
|---|---|---|---|---|---|---|---|---|---|---|
| Runderachtigen, totaal | 2.096 | 2.164 | 2.188 | 2.065 | 2.026 | 2.033 | 2.108 | 2.047 | 2.110 | 1.910 |
| Varkens | 15.373 | 15.169 | 15.572 | 15.686 | 15.884 | 16.084 | 16.931 | 14.750 | 13.860 | 14.083 |
| Schapen | 976 | 942 | 529 | 568 | 579 | 576 | 664 | 539 | 598 | 451 |
| Geiten | 139 | 137 | 177 | 173 | 201 | 209 | 489 | 201 | 211 | 202 |
| Paarden/pony's | 4 | 3 | 2.4 | 1.9 | 1.6 | 1.7 | 1.9 | 2.3 | 2.8 | 2.6 |
| Kippen, vleeskuikens | 628.403 | 621.658 | 625.303 | 625.241 | 600.952 | 523.804 | 517.713 | 492.174 | 482.849 | 508.663 |
2.1.3 Invoer van levende dieren en dierlijke producten
Levende dieren zoals gezelschapsdieren, wilde en/of exotische dieren en paarden, worden regelmatig over de wereld vervoerd. In 2025 zijn er op de Grenscontrolepost (GCP) Schiphol zendingen vanuit tientallen verschillende landen buiten de Europese Unie (derde landen) voor importcontrole aangeboden (Tabel 2.1.7). Van de zendingen bestonden er 2.747 uit zendingen van levende dieren. Niet alle dieren uit deze zendingen zijn bestemd voor Nederland; een deel ervan wordt naar een ander land binnen of buiten Europa doorgevoerd. Zendingen die via andere (Europese unie)-landen Nederland binnenkomen worden in deze tabel niet vermeld. De honden en katten die niet-commercieel reizen (met eigenaar, dus niet voor eigendomsoverdracht bestemd zijn) zijn ook niet opgenomen in de tabel.
Tabel 2.1.7 Aantallen geïmporteerde levende dieren (en aantal partijen) via GCP Schiphol (Bron: NVWA)
| Diercategorie per jaar | 2021 | 2022 | 2023 | 2024 | 2025 |
|---|---|---|---|---|---|
| Siervissen | 24.850.000 (2.268) | 14.267.415 (1117) | 13.206.142 (983) | 12.572.537 (933) | 9.231.658 (580) |
| Varkens | 202 (10) | 37 (1) | 0 | 30 (1) | 0 |
| Paarden | 1.943 (1.943) | 1.950 (1.950) | 2.198 (2.198) | 2.119 (2.119) | 1.214 (1214) |
| Eendags pluimvee | 134.604 (21) | 51.446 (6) | 164.080 (10) | 2.158.122 (15) | 83.116 (3) |
| Honden | 1.766 (1.322) | 878 (646) | 577 (392) | 473 (327) | 389 (116) |
| Katten | 928 (399) | 427 (259) | 282 (148) | 303 (151) | 235 (116) |
| Konijnen | 62 (8) | 14 (18) | 15 (5) | 3 (3) | 2 (2) |
| Fretten | 1 (1) | 1 (1) | 1 (1) | 2 (2) | |
| Rodentia (voor instellingen) | 201 (16) | 386 (9) | 144 (6) | 5 (2) | 54 (2) |
| Insecten | 3.900.000.000 (793) | 3.105.133.353 (979) | 2.405.870.744 (744) | 108.961.892.113 (743) | 1.417.399.031 (549) |
| Wild/exoten | 28.909 (121) | 42.561 (41) | 34.805 (37) | 30.303 (55) | 13.133.190 (17)* |
Om de kans op insleep en verspreiding van besmettelijke dierziekten in Nederland en de EU te beperken, zijn aan de import van levende dieren en dierlijke producten wetten en regels verbonden. Niet-humane primaten, die evolutionair dicht bij de mensen staan, vleermuizen en knaagdieren vormen een (groot) risico voor introductie van zoönosen.
Levende dieren moeten de EU binnenkomen op een door de EU erkende GCP. Dieren voor doorvoer (van een derde land naar een ander derde land) moeten aan de invoereisen van de EU voldoen. De importcriteria zijn gebaseerd op de Europese wetgeving en geïmplementeerd in de Nederlandse regelgeving en instructies. Bij aankomst op de GCP worden de dieren gecontroleerd door een inspecteur-dierenarts van de NVWA.
Literatuur:
- Website Centraal Bureau voor de Statistiek
- Feiten en cijfers van de gezelschapsdierensector 2015, Faculteit Diergeneeskunde (Universiteit Utrecht) en HAS Den Bosch
- Website Dibevo
2.2 Meldingsplichtige zoönosen
Meldingsplichtige zoönosen zijn zoönosen waarbij volgens de wet een melding verplicht is bij een bevoegde autoriteit. Dit geldt ook voor een aantal vastgestelde dierziekten, ziekteverwekkers of symptomen. Afhankelijk van de ziektestatus (verdenking of bevestiging) en de categorie van de ziekte, moet een melding binnen een bepaalde termijn plaatsvinden. In Tabel 2.2.1 staat per wetgeving welke zoönosen meldingsplichtig zijn, of ze zijn opgenomen in deze Staat van Zoönosen, en zo niet, waarom dat het geval is.
In het online Vademecum Zoönosen is praktische informatie te vinden over tijdige signalering, melding en bestrijding van zoönosen, zowel in de humane als veterinaire gezondheidszorg.
Tabel 2.2.1 Relevante meldingsplichtige zoönosen van dier en mens
| Zoönose | Wet dieren | Wpg | SvZ 2025* |
|---|---|---|---|
| Antrax (miltvuur) | ✓ a, b, h | ✓ | ja |
| Aviaire influenza | ✓ c | ✓ | ja |
| Botulisme | - | ✓ | ja |
| Brucellose | ✓ a, b, h | ✓ | ja |
| BSE/TSE/(v)CJD | ✓ a, b, h | ✓ | ja |
| Kwade droes (B. mallei) | ✓ b | - | ja |
| Campylobacteriose | ✓ d | ✓ k | ja |
| Echinokokkose | ✓ d | - | ja |
| Leptospirose | ✓ e | ✓ | ja |
| Listeriose | ✓ d | ✓ | ja |
| MERS-CoV | ✓ h | ✓ | nee, geen relevante gegevens voor Nederland |
| Methicilline-resistente Staphylococcus aureus (community cluster) | - | ✓ | nee, zoönotische overdracht van (veegerelateerde) MRSA is niet meldingsplichtig (zie hoofdstuk 3 van SvZ 2022 voor recente beschrijving) |
| mpox (apenpokken) | ✓ a | ✓ | nee, komt niet voor bij dieren in Nederland |
| Hantavirusinfectie | - | ✓ | ja |
| Aviaire chlamydiose (psittacose, ornithose) en andere chlamydia-infecties van dierlijke oorsprong | ✓ f | ✓ | ja |
| Q-koorts | ✓ i | ✓ | ja |
| Rabiës | ✓ a, b, h | ✓ | ja |
| Rift Valley Fever | ✓ b | - | nee, geen relevante gegevens voor Nederland |
| SARS | - | ✓ | nee, geen relevante gegevens voor Nederland |
| SARS-CoV-2 | - | ✓ | nee, geen relevante gegevens voor Nederland |
| Salmonellose | ✓ d, j | ✓ k | ja |
| SIV (simian immunodeficiency virusinfecties) | ✓ a | - | nee, geen relevante gegevens voor Nederland |
| STEC en andere enterohemorragische E. coli-infectie | - | ✓ | ja |
| TBE (Tick-borne encephalitis/ tekenencefalitis) | - | ✓ | ja, in Hoofdstuk 3: Vector-overdraagbare infecties |
| Toxoplasmose | ✓ d | - | ja |
| Trichinellose | ✓ b | ✓ | ja |
| Tuberculose | ✓ g | ✓ | ja |
| Tularemie | ✓ a | ✓ | ja |
| Virale haemorrhagische koorts (o.a. Ebolavirus, Marburgvirus) | ✓ a | ✓ | nee, geen relevante gegevens voor Nederland |
| Virale paardenencefalomyelitis (o.a. Westnijlkoorts) | ✓ b | ✓ | ja, Westnijlvirus infectie, in Hoofdstuk 3: Vector-overdraagbare infecties |
| Voedselinfectie (cluster) | - | ✓ k | ja |
| Yersiniose | ✓ d | ✓ | ja |
2.2.1 Meldingsplicht bij dieren
Volgens de Wet Dieren1 en de Europese Diergezondheidsverordening zijn dierhouders, dierenartsen en veterinaire laboratoria verplicht bepaalde dierziekten en zoönosen (of een vermoeden daarvan) te melden bij het NVWA Incident en Crisiscentrum (NVIC). Op grond van de Diergezondheidsverordening zijn deze ziekten ingedeeld in de categorieën A t/m E. Voor categorie A en B geldt bovendien een bestrijdingsplicht, wat inhoudt dat bevoegde autoriteiten bindende maatregelen mogen opleggen. De belangrijkste reden om een ziekte bestrijdingsplichtig te maken is de noodzaak van bestrijdingsmaatregelen om gezondheidsschade bij mens en dier op korte en/of lange termijn te voorkomen. Daarnaast kunnen internationale verplichtingen aan de bestrijdingsplicht ten grondslag liggen.
Naast de Europese classificatie heeft de minister van Landbouw, Visserij, Voedselzekerheid en Natuur (LVVN) aanvullend meldingsplichtige dierziekten en ziekteverschijnselen aangewezen. De Wet Dieren bevat bovendien een artikel dat meld- en bestrijdingsplicht mogelijk maakt voor nieuwe dierziekten die een ernstig risico voor de volksgezondheid kunnen vormen. Een actueel overzicht van meldingsplichtige dierziekten is beschikbaar via de NVWA -tool ‘Melden Dierziekte’.
1De Wet dieren is per 21 april 2021 gewijzigd door de inwerktreding van de Regulation (EU) 2016/429, de zogenaamde EU Animal Health Law (AHR). De AHR verwijst vervolgens naar andere Europese regelgeving waaronder de (EU) uitvoeringsverordening 2018/1882. In deze verordening worden een aantal dierziekten in categorieën ingedeeld afhankelijk van de risico’s en verplichte maatregelen. In de Regeling Diergezondheid en Regeling houders van dieren van de Wet dieren worden nadere specificaties aan deze maatregelen gelijst. Zie voorbeeld in paragraaf 2.15.2.
2.2.2 Meldingsplicht bij mensen
Artsen en hoofden van laboratoria zijn, op basis van de Wet publieke gezondheid (Wpg), verplicht een aantal infectieziekten bij mensen (of vermoeden daarvan) te melden bij de (Gemeentelijke gezondheidsdiensten). Deze ziekten zijn ingedeeld in de groepen A1, A2, B1, B2 en C. In geval van ziekten uit de groepen A1, A2 en B1 zijn er mogelijkheden om dwingende maatregelen op te leggen zoals verplichte isolatie van de patiënt. Op grond van deze wet is er ook een meldingsplicht voor een ziektebeeld dat volgens de stand van wetenschap een onbekende oorzaak heeft en waarbij een vermoeden bestaat van besmettelijkheid en ernstig gevaar voor de gezondheid. Ook zijn artsen verplicht melding te doen wanneer ze een voor hun praktijk ongewoon aantal gevallen van een infectieziekte vaststellen die niet behoort tot de groepen en die een gevaar vormt voor de volksgezondheid.
Naast de meldingsplicht die de Wpg oplegt aan artsen en laboratoria moet onder de Wpg (artikel 26) ook het hoofd van een instelling waar kwetsbare groepen mensen verblijven (ziekenhuis, verzorgingshuis, kinderopvang, enz.), een melding bij de GGD doen wanneer zich een ongewoon aantal patiënten of personeelsleden voordoet met klachten waarbij een infectieziekte kan worden vermoed (zoals diarree of huiduitslag).
Verder moeten bedrijfsartsen, maar ook andere betrokken deskundigen of de arbodienst op grond van de Arbeidsomstandighedenwet, (infectie-)ziekten die opgelopen zijn tijdens het werk (beroepsziekten) melden bij het Nederlands Centrum voor Beroepsziekten (NCvB). De verplichting om beroepsziekten te melden ligt bij “de persoon die belast is met de bijstand bij de begeleiding van werknemers die door ziekte niet in staat zijn hun arbeid te verrichten”. In principe zijn alle arbeidsgerelateerde zoönosen meldingsplichtig.
2.2.3 Regelgeving over de opsporing en bestrijding van de bron van een zoönose
In de Gezondheidswet wordt de organisatie van de zorg voor de volksgezondheid geregeld. Hierin is in artikel 36 opgenomen dat het Staatstoezicht tot taak heeft onderzoek te verrichten naar de staat van de volksgezondheid en de determinanten daarvan.
Voor het humane deel zijn de inspectietaak en de bestrijdingstaak vervolgens gescheiden ondergebracht. De Wpg legt de bestrijdingstaak bij de GGD’en, inclusief het bron- en contactopsporingsonderzoek (art. 6 Wpg). Het toezicht op de naleving van het bij of krachtens de Wpg bepaalde wordt uitgeoefend door de Inspectie Gezondheidszorg en Jeugd (IGJ) en de NVWA (artikel 64 Wpg). In het Besluit Staatstoezicht op de volksgezondheid worden de NVWA en de IGJ aangewezen als onderdelen van het Staatstoezicht. In de Gezondheidswet zijn, onder verwijzing naar de Algemene wet bestuursrecht (Awb), tevens de bevoegdheden van het Staatstoezicht opgenomen (artikelen 5.13, 5.15 t/m 5.18 en 5.20 Awb).
Dit houdt onder andere in dat de NVWA bronopsporing mag doen na verzoeken van de GGD’en wanneer mensen ziek zijn geworden na direct of indirect contact met dieren (non-alimentaire zoönosen) of via levensmiddelen, al dan niet van dierlijke oorsprong.
Het opleggen van maatregelen als zodanig is vanuit de staatstoezichtsfunctie niet mogelijk, tenzij bij de uitvoering daarvan bevindingen worden gedaan die onder de invloedsfeer van de Warenwet of de Wet Dieren vallen. Een voorbeeld is dat de NVWA maatregelen mag opleggen bij een positieve C. psittaci bevinding in vogels naar aanleiding van bronopsporing. Dit geldt echter bijvoorbeeld niet voor gehouden ratten die positief zijn bevonden voor Leptospira spp.
De mogelijke opties en de te volgen stappen zijn beschreven in het “Richtsnoer toepassing Wet dieren en Wet publieke gezondheid artikel 47 lid 2 bij niet veterinair meldingsplichtige zoönosen”, dat beschikbaar is via de pagina Vademecum Zoönosen | One Health.
Op grond van artikel 5.3 van de Wet dieren kan een zoönose onmiddellijk worden aangewezen voor bepaalde diersoorten of diercategorieën indien sprake is van een besmettelijke dierziekte die een gevaar vormt voor de dier- of volksgezondheid en waarvan verspreiding niet met normale bedrijfsmiddelen kan worden voorkomen. De aanwijzing geschiedt bij ministeriële regeling en kan direct na bekendmaking in werking treden.
Na aanwijzing beschikt de minister van LVVN over bevoegdheden voor preventie en bestrijding, waaronder maatregelen ten aanzien van dieren, inclusief doden van dieren (art. 5.4 Wet dieren). Indien sprake is van een ernstig gevaar voor de volksgezondheid, worden maatregelen genomen in overeenstemming met de minister van (Ministerie van Volksgezondheid, Welzijn en Sport). De NVWA kan namens de minister uitvoering geven aan deze maatregelen.
Pas wanneer de Wet dieren buiten toepassing blijft, komt de Wet publieke gezondheid (Wpg) in beeld, bijvoorbeeld wanneer dieren worden beschouwd als vector of reservoir van een meldingsplichtige infectieziekte.
In zulke gevallen kan wel artikel 47 van de Wpg van toepassing zijn (opsporen en optreden bij besmette terreinen, gebouwen, goederen, waren, verkeermiddelen, etc).
Artikel 47 van de Wpg geeft ruime mogelijkheden om besmettelijke materialen te beheersen of te vernietigen, maar ook gebouwen of terreinen dan wel gedeelten daarvan te sluiten. In het geval van bijvoorbeeld een Leptospira spp. besmetting mogen de ratten in principe op grond van de Wpg door de GGD bestreden worden, wanneer de burgemeester of de voorzitter van de veiligheidsregio, als bevoegd gezag, daartoe heeft besloten.
Bestrijden kan variëren van uitvoeren van bronopsporing, risico communicatie en/of behandelen tot aan ruimen/euthanasie. Wanneer gebruik gemaakt moet worden van de vangnetfunctie in de Wpg, verzoekt in de meeste gevallen de GGD de NVWA om de feitelijke bestrijding uit te voeren, vanwege de bij de NVWA aanwezige kennis en expertise.
Wanneer de hygiënevoorschriften of andere opgelegde maatregelen niet opgevolgd worden, dan kunnen op grond van artikel 67, eerste lid, Wpg strafsancties (gevangenisstraf van ten hoogste 6 maanden of een geldboete van de derde categorie) worden opgelegd. Het is de arts-infectieziektebestrijding (en niet de GGD directie of manager) die beoordeelt of er ‘een ernstig gevaar' dreigt voor de volksgezondheid (artikel 17 Wpg). Bij complexe gevallen zoals de bevinding van Seoul virus in gehouden ratten, waarbij de enige effectieve optie het vernietigen van de vectoren lijkt, is een goede onderbouwing nog belangrijker.
In het algemeen fungeert de Wpg ten aanzien van zoönosen als vangnet. Per januari 2025 is de Wpg aangepast, waarbij onder andere een verduidelijking is opgenomen van de begrippen vectoren en reservoir. Een vector wordt door de minister gedefinieerd als “een insect of ander dier dat een infectieus agens met zich mee kan voeren en over kan dragen tussen dieren of mensen waardoor een volksgezondheidsrisico kan ontstaan”. Een reservoir als “een dier, plant of substantie waarin een infectieus agens normaliter leeft en wiens aanwezigheid een volksgezondheidsrisico zou kunnen vormen”.
Vanwege het preventieve belang voor de humane gezondheid zijn de artikelen 6a en 47a opgenomen in de Wpg. Op grond van deze artikelen is de minister van VWS (Ministerie van Volksgezondheid, Welzijn en Sport), in plaats van de gemeente, verantwoordelijk voor de bestrijding van de vestiging van bij algemene maatregel van bestuur (AMvB) aangewezen vectoren of reservoirs. De minister is op grond hiervan tevens bevoegd om te controleren op dergelijke vectoren of reservoirs en preventieve voorschriften op te leggen, waaronder het nemen van bestrijdingsmaatregelen. In de meeste gevallen zal voor de uitvoering bijstand gevraagd worden van de NVWA. Ter verduidelijking; het gaat hier om vectoren of reservoirs die enkel voor mensen gevaarlijk zijn. Deze vallen niet onder de Diergezondheidsverordening en worden dus bestreden op grond van de Wpg. Vectoren of reservoirs die voor dieren gevaarlijk zijn, worden bestreden op grond van de Diergezondheidswetgeving. Vectoren of reservoirs die zowel voor mens als dier gevaarlijk zijn, worden op grond van beide wetten of op grond van één van deze wetten bestreden, afhankelijk van de aard van de benodigde bestrijding.
2.3 Dierziekte-vrij status
Voor bepaalde besmettelijke dierziekten kunnen landen lid van de Wereldorganisatie voor diergezondheid (WOAH, voorheen OIE) een officiële vrij-status notificeren. Deze status geeft aan dat een land vrij is van een specifieke ziekte op basis van internationale criteria.
De voorwaarden waaronder een land de WOAH officiële vrij-status voor een bepaalde ziekte kan verkrijgen variëren. Meestal zijn dat minimaal een effectief nationaal surveillancesysteem, een door de WOAH geaccepteerd epidemiologisch rapport en een meldingsplicht voor de betreffende ziekte. De specifieke eisen voor elke ziekte, evenals de actuele vrij-status per land, zijn te vinden in de database van de WOAH (WAHIS).
De regeling voor deze ‘officieel vrij-status’ is in eerste instantie ingesteld om de internationale handel in levende dieren en dierlijke (levende) (bij)producten te beschermen en te bevorderen.
In sommige gevallen kan een land deze status behouden, ook al zijn er ziektegevallen gemeld. Dat is bijvoorbeeld mogelijk wanneer een ziekte het land binnenkwam via besmette importdieren, maar er geen verdere of slechts minimale verspreiding heeft plaatsgevonden binnen eigen grenzen.
Hieronder staat de status voor Nederland in 2025 voor wat betreft de relevante zoönosen.
Aanwezige zoönosen:
- Aviaire chlamydiose (Chlamydia psittaci)
- Echinokokkose (Echinococcus multilocularis)
- Hoog Pathogene Aviaire Influenza (HPAI)
- Laag Pathogene Aviaire Influenza (pluimvee) (LPAI)
- Enzootic abortion/chlamydiose (Chlamydia abortus)
- Q-koorts (Coxiella burnetii)
- Salmonellose
- Trichinellose
- Tularemie (Francisella tularensis)a
- Westnijlkoorts
agevonden in wilde dieren.
Nooit gerapporteerde zoönosen:
- Brucellose (Brucella melitensis)
- Equine encefalomyelitis (Westerse)
- Equine encefalomyelitis (Oosterse)
- Japanse encefalitis
- Krim-congo hemorragische koorts (CCHF)
- Nipah-virus encefalitis
- Ovine epididymitis (Brucella ovis)
- Rift Valley Fever
- Salmonellose (S. Abortusovis)
- Trypanosomose (o.a. Chagas)
- Venezuelaanse equine encefalomyelitis
Afwezige zoönosen:
- Antrax/miltvuur (Bacillus anthracis)
- Bovine spongiforme encefalopathie (BSE)
- Bovine tuberculose (Mycobacterium bovis)
- Brucellose (Brucella abortus)
- Brucellose (Brucella suis) bij varkens en vee
- Echinokokkose door Echinococcus granulosus
- Kwade droes (Burkholderia mallei)
- Leishmaniasis
- Porcine cysticercose (Taenia solium bij de mens)
- Rabiësb
- Ziekte van Newcastlec
bHet voorkomen van vleermuisrabiës (EBLV) heeft geen invloed op de WOAH vrij-status.
cHet voorkomen van de duivenvariant (PPMV) heeft geen invloed op de WOAH vrij-status.
2.4 Antrax
2.4.1 Hoofdpunten
- In 2025 zijn door (Wageningen Bioveterinary Research) twee inzendingen van grondmonsters en één inzending van beenderen onderzocht op de aanwezigheid van B. anthracis sporen. In deze inzendingen werd met PCR geen B. anthracis aangetoond. Daarnaast ontving WBVR op speciaal verzoek onderzoeksmateriaal van een humane patiënt, er werd geen B. anthracis aangetoond met PCR.
- In de afgelopen tien jaar (2016-2025) zijn slechts twee gevallen van huidantrax gemeld, beide in 2018 en beide in het buitenland opgelopen.
Antrax, veroorzaakt door de bacterie Bacillus anthracis, komt wereldwijd voor. Hoewel in principe alle zoogdieren besmet kunnen worden, is het vooral een (per)acute, vaak fatale infectieziekte bij wilde en gedomesticeerde herkauwers. Een belangrijke eigenschap van deze bacterie is de vorming van sporen die uitzonderlijk resistent zijn tegen hitte en indroging en daardoor decennialang in de bodem kunnen overleven. Bij opname door een gastheer zullen de sporen ontkiemen, zich vermenigvuldigen en daarbij toxines vormen met oedeemvorming, necrose van endotheelcellen en bloedingen tot gevolg. De cutane vorm, waarbij besmetting via de huid heeft plaatsgevonden, komt bij mensen het meeste voor. Er ontstaat dan een pijnloos, jeukend bultje wat na een paar dagen overgaat in een blaartje. Daarna ontstaat een zweer die is bedekt met een zwarte korst, met eromheen zwelling en blaasjes. Op de plek van de zweer blijft een permanent litteken achter. Onbehandeld kan cutane antrax in 10 tot 20% van de gevallen fataal zijn. Na inhalatie van aerosolen kan respiratoire antrax ontstaan en na ingestie van met B. anthracis besmet voedsel gastro-intestinale antrax. Beide vormen hebben een hogere case fatality rate dan cutane antrax.1
De naam antrax is afgeleid van de antracietkleurige zweer ter plaatse van de porte d’entrée bij de cutane vorm van antrax bij mensen. Het synoniem miltvuur is afgeleid van de zeer sterk vergrote milt die veel gezien wordt bij geïnfecteerde runderen en schapen, maar ook bij humane patiënten kan optreden.
2.4.2 Antrax bij mensen
Miltvuur is conform de Wet publieke gezondheid een meldingsplichtige ziekte groep C. Het staat hoog op de lijst van potentiële biologische wapens, ondanks dat mensen relatief ongevoelig zijn voor miltvuur. Dit heeft te maken met de grote hoeveelheid infectieus materiaal waaraan mensen bij moedwillige besmetting kunnen worden blootgesteld. De poederbrieven die in 2001 in de Verenigde Staten zijn verstuurd laten dit zien. De miltvuursporen die bij het openmaken vrij kwamen leidden tot 22 besmettingen en eisten uiteindelijk vijf slachtoffers.2 Het ging hier ook om weaponized materiaal; door het toevoegen van een statische lading gedroegen antrax sporen zich als een aerosol waardoor de verspreiding gemakkelijk verliep. Ook in Nederland zijn sindsdien poederbrieven verzonden die door het (Rijksinstituut voor Volksgezondheid en Milieu) op miltvuurbacteriën worden onderzocht. In Nederland is overigens nooit B. anthracis in de poederbrieven aangetroffen.
In Europa is de incidentie van miltvuur bij mensen in de loop van de twintigste eeuw drastisch gedaald. Tegenwoordig komt het slechts sporadisch voor en treft dan meestal boeren of medewerkers in textiel- of wolfabrieken, die in contact komen met besmette dieren of dierproducten. In Nederland is miltvuur bij mensen uiterst zeldzaam. In totaal zijn sinds 1976 (het jaar waarin de ziekte meldingsplichtig is gemaakt) negen gevallen van humane antrax beschreven. De twee meest recente werden in 2018 gemeld met huidantrax opgelopen in Tanzania en Turkije. In 2025 zijn geen nieuwe meldingen van humane antrax gedaan. Wel ontving WBVR op speciaal verzoek onderzoeksmateriaal afkomstig van een patiënt, hierbij werd met PCR geen B. anthracis aangetoond.
2.4.3 Antrax bij dieren
In Zuid- en Zuidoost-Europa komt miltvuur bij dieren nog steeds regelmatig voor. In de overige Europese landen komt de ziekte slechts sporadisch voor. In 2025 werd bij de WAHIS (World Animal Health Information System) van de WOAH en (Europese unie) (Europese Unie) via het Animal Disease Information System melding gemaakt van miltvuur in Kroatië (n=38), Frankrijk (n=1), Spanje (n=6), Roemenië (n=1) en Bosnië Herzegovina (n=1).3,4 Gevallen bij vee betreffen vrijwel altijd weidende dieren die in gebieden met een geschiedenis van miltvuur sporen via grazen opnemen.
De laatste Nederlandse uitbraken van antrax bij rundvee dateren uit begin jaren negentig van de vorige eeuw. In het verleden werden dieren die gestorven waren door miltvuur bij het begraven bestrooid met ongebluste kalk in een poging de kiem onschadelijk te maken. Dergelijke ‘witte kuilen’ kunnen nog steeds worden aangetroffen bij graafwerkzaamheden. Bij verdenkingen van miltvuur bij dieren of bij het aantreffen van witte kuilen wordt materiaal door WBVR onderzocht op de aanwezigheid van B. anthracis. In 2025 werden twee inzendingen van grondmonsters en één inzending van beenderen ontvangen. In deze inzendingen werd met PCR geen B. anthracis aangetoond.
Literatuur:
- RIVM. LCI richtlijnen Antrax
- A history of Antrax. Centers for Disease Control and Prevention
- Animal Disease Information System (ADIS). European Commission
- World Animal Health Information System (WAHIS). WOAH (World Organisation of Animal Health, voorheen OIE)
Auteurs: Marcel Spierenburg, Lola Tulen, Marleen Kannekens-Jager
2.5 Aviaire influenza (vogelgriep)
2.5.1 Hoofdpunten
- In 2025 zijn 32 commerciële pluimveebedrijven besmet geraakt met het hoogpathogene aviaire influenza (HPAI) H5N1-virus. Dit zijn er aanzienlijk meer dan de twee bedrijven die in 2024 besmet raakten. Drie bedrijven werden getroffen in de eerste maanden van 2025, de rest vanaf oktober.
- In 2025 testten 340 wilde vogels positief op HPAI H5-virus, aanzienlijk meer dan de 72 in 2024. De piek lag in de herfst en winter. Van april tot en met september werd het virus maar in een beperkt aantal gevallen aangetoond. Vanaf oktober nam het aantal positieve vogels weer sterk toe.
- In 2025 is HPAI H5N1-virus in Nederland aangetoond in acht vossen, twee zeehonden en voor het eerst in twee katten.
2.5.2 Wat is aviaire influenza?
Aviaire influenza (ook wel vogelgriep genoemd) is een verzamelnaam voor verschillende influenzavirussen die bij vogels voorkomen, met name bij watervogels. Pluimvee is ook erg gevoelig voor infecties met aviaire influenza. Soms raken ook zoogdieren besmet. Er bestaan erg ziekmakende (hoogpathogene) varianten en minder ziekmakende (laagpathogene) varianten. Aviaire influenzavirussen worden getypeerd op basis van twee oppervlakte-eiwitten: hemagglutine (H) en neuraminidase (N). Het subtype dat op dit moment het meest in Nederland wordt gevonden is H5N1.
2.5.3 Hoogpathogene en laagpathogene aviaire influenza-virussen
Het onderscheid tussen hoogpathogene aviaire influenza (HPAI) en laagpathogene aviaire influenza (LPAI) is gebaseerd op het klinisch beeld bij pluimvee. Bij infecties met LPAI-virussen bij pluimvee zijn klinische symptomen doorgaans mild. LPAI-virussen met een hemagglutinine-type H5 of H7 kunnen naar hoogpathogene varianten muteren. HPAI-virussen kunnen ernstige ziekte en tot 100% mortaliteit veroorzaken in pluimvee.
In de verplichte monitoring en early warning1 van aviaire influenza bij commercieel gehouden pluimvee worden met enige regelmaat LPAI-virussen of afweerstoffen tegen deze virussen gevonden. LPAI-virussen komen van nature voor in wilde watervogels en kunnen door deze vogels bij gehouden pluimvee worden geïntroduceerd.2 Voor pluimvee met uitloop geldt dan ook een hoger risico en daardoor een hogere monitoringsfrequentie. Met moleculaire technieken en dierstudies kunnen LPAI-virussen van HPAI-virussen worden onderscheiden.
Pluimvee komt met vogelgriep in contact door uitwerpselen of door direct contact met besmette wilde vogels. In 2025 zijn er geen LPAI-virussen op pluimveebedrijven aangetoond. In 2024 zijn vijf LPAI-virussen op pluimveebedrijven aangetoond, namelijk:
- LP H5N1 (herhaaldelijk op één bedrijf)
- H2N3
- H10N7
- H9N2
- H2N5
In 2023 werden er twee LPAI-virussen aangetoond, in 2022 waren er geen detecties van LPAI-virussen en in 2021 waren er zeven introducties van LPAI-virussen op pluimveebedrijven.
Sinds 1996 circuleren HPAI H5-virussen in wilde watervogels in Azië. Eind 2005 introduceerden trekvogels een HPAI H5N1-virus in Europa. De epidemie onder wilde watervogels heeft zich sindsdien sterk uitgebreid, en er zijn via reassortment inmiddels vele subtypen ontstaan vanuit dit HPAI H5N1-virus, zoals H5N2, H5N3, H5N5, H5N6 en H5N8.
In Nederland werd de pluimveesector meerdere jaren getroffen door uitbraken van HPAI H5-virussen:
- in 2014 door H5N8
- in 2016 door een genetisch verschillend H5N8-virus
- in 2017 door H5N6
- in 2020 weer door H5N8
- vanaf 2021 tot heden door H5N1
2.5.4 Vogelgriep in pluimvee in 2025
In 2025 zijn aanzienlijk meer pluimveebedrijven besmet geraakt met HPAI H5-virussen dan in 2024, namelijk 32 commerciële pluimveebedrijven en 5 grotere hobbyhouderijen tegenover twee pluimveebedrijven in 2024. Van de virussen die op deze bedrijven werden gevonden, en van een set wilde vogelvirussen, zijn de volledige genoomsequenties bepaald. Fylogenetische analyse liet zien dat de virussen behoren tot HPAI H5N1-clade 2.3.4.4b. Sinds 2024 zijn het genotype EA-2024-DI en de subtypen DI.1 en DI.2 dominant in Europa. Vanaf september 2025 is deze dominantie overgegaan naar het subtype DI.2.1. Dit zijn ook de gevonden subtypen op de bedrijven: van januari tot en met maart 2025 betrof dit genotype DI.2 (n = 3) en vanaf oktober 2025 betrof dit genotype DI.2.1 (n = 33). De enige uitzondering betrof één bedrijf in december 2025. Daar werd genotype DI.2.1 met een reassortment in het NP-segment gevonden.
Mutaties in het virusgenoom zijn geanalyseerd met de FluMut-tool.3 De virussen zijn vergeleken met een HPAI H5N1-virus dat in 2024 in pluimvee is gevonden. Het genotype DI.2.1 heeft ten opzichte van DI.2 een adaptatie in het nonstructural eiwit (NS) (NS-1:N205S,NS-2:T48A) – wat in onderzoek bij fretten voor een verlaagde antivirale respons zorgt.4 De meeste andere mutaties die al in het pluimveevirus van 2024 werden vastgesteld, bleken nog steeds aanwezig in het virus dat in 2025 bij pluimvee is aangetroffen.
2.5.5 Vogelgriep in wilde vogels in 2025
In het kader van het passieve surveillancesysteem voor dode wilde vogels werden in 2025 aanzienlijk meer vogels ingezonden dan in 2024. In totaal zijn 733 kadavers onderzocht, waarvan 340 positief testten op influenzavirus A. Bij 337 van deze gevallen werd een HPAI H5N1-virus vastgesteld. Van een aantal van deze HPAI H5N1-virussen zijn de volledige genoomsequenties bepaald. Volgens de fylogenetische analyse behoren ze allemaal tot de H5-clade 2.3.4.4b-virussen. Op basis van de samenstelling van de verschillende genomische segmenten is het genotype van de virussen vastgesteld met de Genin2-tool.5 Het EA-2024-DI-genotype, met de subtypes DI.2 en DI.2.1, werd daarbij geïdentificeerd als dominant. Dit was ook het meest voorkomende genotype in andere Europese landen. Daarnaast werden drie LPAI-virussen (H12N5, H7N7 LPAI, H5N1 LPAI) aangetroffen.
Tot en met 2021 werden aviaire influenza-virussen steeds in het najaar naar Nederland gebracht door wilde trekvogels die de winter doorbrengen in ons land. De piek lag in de wintermaanden. In 2022 veranderde dit, en werd voor het eerst een jaarronde circulatie van HPAI H5N1-virussen in Nederland (en Europa) vastgesteld, met een piek in de zomermaanden tijdens het broedseizoen van kolonie-broedende vogels (zoals meeuwen en sterns). In 2022 en 2023 werd er massale sterfte waargenomen in broedkolonies. In 2025 bleef de viruscirculatie gedurende de lente- en zomermaanden beperkt.
Vanaf oktober 2025 nam het aantal gevonden en geteste dode wilde vogels weer sterk toe. In oktober testten 72 vogels positief op HPAI H5, in november waren dat er 106. Dit waren vooral ganzensoorten, zwanen en roofvogels. De roofvogels zijn waarschijnlijk geïnfecteerd geraakt door het eten van besmette zieke of dode vogels.
2.5.6 Vogelgriep in zoogdieren in 2025
Net als in voorgaande jaren is ook in 2025 HPAI H5N1-virus aangetoond bij (wilde) zoogdieren in Nederland, namelijk bij vossen (n = 8), zeehonden (n = 2) en voor het eerst bij katten (n = 2). De positieve katten kwamen uit waterrijke buitengebieden in Noord-Holland en Friesland. Beide hadden toegang tot boerenbedrijven en kunnen het virus hebben opgelopen uit de omgeving of via direct contact met wilde vogels. Voor meer informatie over de eerste casus van een kat besmet met H5N1 kunt u het VetInfact-bericht hierover lezen.
Het virus dat werd gevonden bij de zoogdieren week genetisch niet af van de HPAI-virussen die in wilde vogels zijn aangetroffen. Genetische analyses van de virussen uit 2022-2024 wijzen erop dat zoogdieren waarschijnlijk geïnfecteerd raken door het eten van besmette wilde vogels. Tot op heden zijn er geen aanwijzingen voor aanhoudende transmissie van HPAI-virussen tussen wilde zoogdieren, in Nederland of elders in Europa.
2.5.7 Vogelgriep in mensen in 2025
Van HPAI-virussen (subtypes H5 en H7) is bekend dat ze mensen kunnen infecteren met ernstige ziekte of sterfte tot gevolg. Daarnaast kunnen ook diverse subtypen LPAI mensen infecteren met heel wisselend ziektebeeld, van milde klachten tot ernstige ziekte en sterfte. Vaak spelen mogelijke onderliggende condities van de patiënt hierbij een rol. In 2025 zijn wereldwijd humane infecties gerapporteerd met:
- HPAI H5N1
- HPAI H5N5
- HPAI H5N2
- LPAI H9N2
- LPAI H10N3
Er zijn in 2024 en 2025 geen nieuwe infecties gemeld van subtypen LPAI H3N8 en H10N5, die in 2023 wel werden gerapporteerd. Ook zijn er geen nieuwe infecties met HPAI H5N6 en HPAI of LPAI H7N9 of H7N7 bekend.6,7
Hieronder geven we een overzicht van de wereldwijde humane casussen met HPAI en LPAI die in 2025 aan de Wereldgezondheidsorganisatie (WHO) zijn gerapporteerd.
2.5.7.1 HPAI H5N1 internationaal
In 2025 zijn er wereldwijd dertig humane casussen met HPAI H5N1 gemeld aan de WHO, waarvan er twaalf zijn overleden. Dit brengt het totaal in de periode 2003-2025 op 993 bevestigde gevallen van HPAI H5N1 in mensen gerapporteerd aan de WHO, waarvan er 477 overleden.8
In het verleden vonden humane infecties met HPAI H5N1 meestal plaats in Zuidoost-Azië en Egypte. In 2024 viel het grote aantal humane infecties (68) in de Verenigde Staten op. Deze infecties hielden verband met de HPAI H5N1-uitbraken op pluimveebedrijven en melkveebedrijven. In 2025 zijn er slechts drie humane infecties met HPAI H5N1 in de VS gerapporteerd. In Cambodja werden de meeste infecties gerapporteerd: 18, waarvan 9 overlijdens. Allen vonden plaats na contact met besmet pluimvee of uitwerpselen van besmette vogels of pluimvee.
Verder zijn er in 2025 infecties gemeld in: Bangladesh (3), India (2), China (1), Mexico (1), Verenigd Koninkrijk (1) en Vietnam (1).
2.5.7.2 HPAI H5N5 internationaal
Naast HPAI H5N1 was er in 2025 één melding van een humane infectie met HPAI H5N5-virus in de VS. Dit is de eerste bekende infectie met HPAI H5N5 in mensen. De persoon had onderliggend lijden en is uiteindelijk aan de infectie overleden. De casus had als hobbyhouder contact gehad met pluimvee en wilde vogels.
2.5.7.3 HPAI H5N2 internationaal
Nadat in 2024 de eerste humane casus met HPAI H5N2 gemeld was in Mexico, was er in 2025 een tweede bevestigde infectie met een HPAI H5N2, wederom in Mexico. De casus had contact gehad met pluimvee en wilde vogels.
2.5.7.4 LPAI H9N2 internationaal
Naast de hierboven genoemde humane infecties met HPAI zijn er in 2025 ook 39 humane infecties met een LPAI-virus aan de WHO gerapporteerd. Dit brengt het totaal op 195 gerapporteerde humane H9N2-infecties. Alle infecties in 2025 vonden plaats in China en bij de meeste casussen was sprake van bevestigde blootstelling aan pluimvee besmet met LPAI H9N2.
2.5.7.5 LPAI H10N3 internationaal
Er zijn in 2025 drie humane infecties met LPAI H10N3 gemeld, allen in China. Het betrof bij alle drie een ernstige infectie met longontsteking, na contact met (dood) pluimvee. Alle drie de casussen zijn hersteld. In totaal zijn nu zes humane infecties met H10N3 bekend: twee in 2022, één in 2024 en drie in 2025.
2.5.7.6 HPAI H5N1 monitoring in Nederland
In Nederland zijn tot op heden geen humane infecties met HPAI H5N1 vastgesteld. Ook zijn er in 2025 geen humane infecties met LPAI gedetecteerd in Nederland.
In Nederland zijn twee vormen van monitoring van mogelijke infecties met HPAI H5N1 van mensen die zonder bescherming zijn blootgesteld: actieve surveillance en passieve surveillance.9,10
2.5.7.6.1 Actieve surveillance
De actieve surveillance is in de zomer van 2023 gestart. Alle (onbeschermd) blootgestelde medewerkers, dierenartsen, familieleden die op het bedrijf wonen en andere blootgestelden wordt gevraagd zelf een keel-neusmonster af te nemen en voor PCR-analyse naar het (Rijksinstituut voor Volksgezondheid en Milieu) te sturen. Ook wordt aan hen gevraagd met een vingerprik een bloedmonster af te nemen en in te sturen. Bij een positieve PCR-test neemt de (Gemeentelijke gezondheidsdiensten) zo snel mogelijk een tweede keel-neusmonster af en 3-4 weken na blootstelling een bloedmonster. De combinatie van de PCR-test en de serologische analyses maakt het mogelijk om onderscheid te maken tussen een daadwerkelijke infectie en mogelijke omgevings-contaminatie.
2.5.7.6.2 Passieve surveillance
Testen bij verdenking na onbeschermde blootstelling, ook wel passieve surveillance genoemd, bestaat al langer. Hierbij wordt na blootstelling aan HPAI besmet pluimvee, medewerkers en andere blootgestelden gevraagd bij het ontstaan van luchtwegklachten contact op te nemen met de GGD voor monsterafname en een PCR-test. Deze procedure is onveranderd sinds de invoering van de actieve surveillance. Dus ook als iemand al getest is bij deelname aan de actieve surveillance, dient deze contact op te nemen met de GGD bij het ontstaan van luchtwegklachten om opnieuw getest te worden.
2.5.7.6.3 Testen bij mensen in Nederland in 2025
In 2025 zijn er 32 HPAI H5N1-uitbraken geweest op pluimveebedrijven in Nederland en 5 bij grotere hobbyhouderijen. In totaal zijn er 46 mensen getest als onderdeel van de actieve surveillance en 23 mensen met klachten (verdenking). Hierbij zaten ook enkele mensen die als medewerker van een vogelopvang of dierenambulance aan bijvoorbeeld besmette wilde vogels waren blootgesteld. Ook is een gezin getest dat was blootgesteld aan een besmette kitten. In geen van de afgenomen monsters werd aviair influenzavirus gevonden. Tot op heden is er dus geen humane infectie met HPAI H5N1 waargenomen in Nederland, ondanks intensieve monitoring van (onbeschermd) blootgestelde individuen.
2.5.8 Risico analyse vogelgriep Nederland
Twee keer per jaar komt een multidisciplinaire expertgroep samen om het risico van HPAI in Nederland te beoordelen. De expertgroep kijkt naar de stand van vogelgriep (zowel HPAI als LPAI) in Nederland en andere landen en schat in hoe groot het risico is voor de volksgezondheid. Hiervoor is informatie beschikbaar binnen de diverse (internationale) projectgroepen waar de experts bij betrokken zijn. Tijdens een overleg beantwoordt de expertgroep de volgende vragen:
- Welke varianten van HPAI gaan er wereldwijd rond?
- Zijn daar varianten bij die resistent zijn tegen antivirale medicijnen?
- Hoe groot is de kans op besmetting van zoogdieren en mensen?
- Hoe past het virus zich aan?
- Hoe is de situatie in Nederland en onze buurlanden?
- Zijn mensen in Nederland met besmette dieren in aanraking geweest en zijn daar besmettingen uit voortgekomen?
- Hoe is de situatie in de rest van de wereld bij dieren en mensen?
Op basis van de criteria waar de expertgroep naar kijkt, is er geen reden om het risico voor de algemene bevolking in 2025 anders in te schatten dan in 2024. Door het hoge aantal besmettingen bij wilde vogels en bij pluimveehouderijen, is de kans op blootstelling voor mensen die voor hun werk met (mogelijk) besmette dieren in aanraking komen wel hoger dan in 2024.
Eind 2025 was de risico-inschatting van de expertgroep:
- zeer laag voor de algemene Nederlandse bevolking
- gemiddeld voor mensen die voor hun werk met besmette dieren in aanraking komen (dit was laag/gemiddeld in mei 2025)
Literatuur:
- Animal Health Law, Regulation (EU) 2016/429, 2021
- Spickler, A.R., Avian Influenza Factsheet. 2016, Iowa State University/OIE
- Giussani, E., et al., FluMut: a tool for mutation surveillance in highly pathogenic H5N1 genomes. Virus evolution. 2025; 11(1), veaf011
Imai H. et al. The HA and NS genes of human H5N1 influenza A virus contribute to high virulence in ferrets. PLoS Pathog. 2010;6:e1001106.
FAO H7N9 Situation update. 2019. Food and Agriculture Organization
- WHO. Global Influenza Programme: Risk Assessment and summaries of influenza at the human-animal interface, 2024, World Health Organization
- WHO. Cumulative number of confirmed human cases for avian influenza A(H5N1) reported to WHO, 2003-2024. 2024, World Health Organization
- RIVM, LCI-Richtlijn Influenza van dierlijke oorsprong. 2015. Bilthoven: RIVM
- RIVM, LCI-Draaiboek Hoogpathogene aviaire influenza op een pluimveebedrijf. 2025. Bilthoven: RIVM.
2.6 Botulisme
2.6.1 Hoofdpunten
- In de afgelopen tien jaar zijn in Nederland slechts zeven gevallen van botulisme bij mensen gemeld.
- In 2025 werd één geval van voedsel-gerelateerd botulisme bevestigd met laboratoriumdiagnostiek. Daarnaast werd één klinisch waarschijnlijk geval gemeld zonder laboratoriumbevestiging.
Botulisme is een intoxicatie veroorzaakt door botulinum neurotoxines (BoNT), geproduceerd door Clostridium botulinum of in sporadische gevallen door bepaalde stammen van C. argentinensis, C. baratii of C. butyricum. De sporen van deze bacteriën komen voor in de omgeving en kunnen onder de juiste condities (o.a. anaeroob milieu, voldoende hoge temperatuur en eiwitrijk substraat) uitgroeien tot BoNT producerende bacteriën. BoNT wordt beschouwd als het meest potente, natuurlijk voorkomende toxine, waarvan verschillende typen zijn beschreven. De mens is gevoelig voor BoNT-typen A, B en E (en zeer zelden type F). Bij andere zoogdieren wordt over het algemeen BoNT type C of D gevonden of mosaïc varianten daarvan, bij vogels meestal het BoNT/C of mosaïc type CD en bij vissen BoNT/E.
2.6.2 Botulisme bij de mens
Botulisme geeft een acuut, koortsvrij beeld. De symmetrische, afdalende, slappe verlamming begint altijd met een dubbelzijdige uitval van de aangezichts- en keelmusculatuur. Meestal betreft botulisme bij mensen een voedselvergiftiging waarbij neurotoxines zijn gevormd in onvoldoende geconserveerde levensmiddelen (bekend zijn zelf ingemaakte producten). Andere vormen van botulisme zijn wondbotulisme en infantiel botulisme. De laatstgenoemde vorm komt voor bij zuigelingen, waarbij uitgroei mogelijk is van sporen van C. botulinum in de darm door onvoldoende ontwikkeling van competitieve darmflora. Aangezien honing bacteriesporen kan bevatten van C. botulinum, wordt afgeraden honing te geven aan kinderen jonger dan een jaar.1 Iatrogeen botulisme ontstaat na therapeutische of cosmetische toediening van botulinetoxine. De symptomen van iatrogeen botulisme komen overeen met die van andere vormen van botulisme. In tegenstelling tot botulisme is iatrogeen botulisme geen meldingsplichtige ziekte.
In Nederland komt botulisme bij mensen slechts zeer incidenteel voor. In de periode 2016-2024 zijn er drie voedsel-gerelateerd en één geval van infantiel botulisme gemeld. Daarnaast werd in 2024 voor het eerst een melding gedaan van iatrogeen botulisme, ontstaan na medisch ingrijpen. De drie patiënten met voedsel-gerelateerd botulisme zijn mogelijk in Nederland geïnfecteerd (twee in 2016 en één in 2022), waarbij één van hen uit Polen kwam.2 Bij alle drie de gevallen kon de bron niet bevestigd worden. Bij de baby (< 1 jaar) met laboratorium bevestigd infantiel botulisme (in 2023) werd een zalf op honingbasis, meegebracht uit Zuid-Afrika, verdacht als mogelijke bron, echter bij laboratorium onderzoek konden hierin geen sporen van C. botulinum worden aangetoond. Het in 2024 gemelde geval van iatrogeen botulisme trad op na toediening van botulinetoxine A voor de behandeling van spasticiteit. Op basis van het lichaamsgewicht was een te hoge dosering toegediend. Na toediening van antitoxine stabiliseerde het neurologisch beeld.
In 2025 werd door Wageningen Bioveterinary Research (WBVR) materiaal onderzocht afkomstig van vijf patiënten, in verband met verdenking op of ter uitsluiting van botulisme. Er werd één geval bevestigd met laboratoriumdiagnostiek op aanwezigheid van botulinetoxine A, dit betrof voedsel-gerelateerd botulisme. De consumptie van vacuüm verpakte viskoekjes (otak-otak), meegenomen uit Indonesië, werd als waarschijnlijke oorzaak van de infectie beschouwd. Het restant van de viskoekjes was niet meer beschikbaar voor onderzoek.
Daarnaast werd in 2025 een patiënt gemeld met een klinisch beeld passend bij botulisme, waarbij geen toxines werden aangetoond, maar wel de aanwezigheid van C. botulinum type B in de ontlasting. De monsterafname vond meer dan zeven dagen na het ontstaan van de eerste symptomen plaats, wat een waarschijnlijke verklaring is voor het ontbreken van toxinedetectie. Ondanks het ontbreken van een definitieve laboratoriumbevestiging op basis van aanwezigheid van botulinum neurotoxines, is deze casus toch als meldingsplichtig voedsel-gerelateerd botulisme beschouwd. De infectie werd vermoedelijk in Nederland opgelopen, waarbij de bron onbekend bleef.
2.6.3 Botulisme bij dieren
Botulisme is vooral bekend van uitbraken bij watervogels. C. botulinum komt algemeen in Nederland voor in (water)bodems en daarmee ook in het darmkanaal van vissen en (water)vogels. Kadavers van dode dieren vormen ideale anaerobe en eiwitrijke condities die kunnen leiden tot groei van C. botulinum waarbij toxines worden geproduceerd. In de zomermaanden (juni, juli en augustus) worden de meeste uitbraken onder watervogels gezien, vanwege de snelle groei van C. botulinum bij temperaturen boven de 25°C. De zomer van 2025 in Nederland was warmer en zonniger dan gemiddeld, met vooral in juni en juli vaak warm tot zeer warm weer. Augustus verliep wisselvalliger, maar eindigde nog steeds met temperaturen rond of iets boven normaal. Ondanks de warme maanden was het aantal inzendingen niet veel hoger dan in andere jaren. Er zijn in totaal 50 dieren uit 15 inzendingen onderzocht, in driekwart van de inzendingen werd botulinetoxine C aangetoond (62% van de onderzochte dieren). Dit percentage is iets hoger dan voorgaande jaren, wat kan worden toegeschreven aan een nieuwe, gevoeligere test. Sinds april 2025 is door (Wageningen Bioveterinary Research) een in-vitrotest geïmplementeerd, waarmee afscheid kon worden genomen van de bioassay voor het aantonen van botulinetoxine.
Een van de inzendingen uit juli 2025 betrof de vogelsoort casarca (roestgans, Tadorna ferruginea) afkomstig van een eiland in het IJsselmeer. Het eiland is een natuurgebied waar veel watervogelsoorten voorkomen. Voor de casarca is dit een belangrijk rui gebied. Eerst stierven vooral casarca's maar later ook andere watervogels. Het klinisch beeld leek op botulisme. Vijf casarca's zijn toen bij WBVR onderzocht en er werd botulinetoxine C aangetoond, nadat eerst hoog-pathogene vogelgriep was uitgesloten. Bij DWHC zijn vijf andere casarca's onderzocht die tegelijk werden verzameld, daarin was geen aanwijzing voor een andere doodsoorzaak.
In tegenstelling tot botulisme bij mensen is botulisme bij dieren niet meldingsplichtig en wordt het aantal gevallen niet centraal geregistreerd. Net als in vorige jaren kwamen in 2025 botulisme uitbraken voor bij zowel rundvee als pluimvee. Bij rundvee ging het om een 35-tal verdenkingen waarbij materiaal werd ingestuurd voor laboratoriumbevestiging, bij pluimvee om twee inzendingen. Tevens werd in 2025 eenmaal materiaal ingestuurd in verband met een verdenking van botulisme bij een paard, en eenmaal bij een hond. In beide gevallen kon de verdenking niet worden bevestigd.
Literatuur:
- (Rijksinstituut voor Volksgezondheid en Milieu). LCI-richtlijn Botulisme 2019
- Hintaran A.D., et al. Botulisme bij een Poolse arbeider in Zeist. Tijdschr Infectieziekten. 2017;12(3):84-7
2.7 Brucellose
2.7.1 Hoofdpunten
- In 2025 zijn er geen bevestigde gevallen van Brucella bij runderen, schapen, geiten of varkens gemeld bij de (Nederlandse Voedsel- en Warenautoriteit). Er zijn, na zeven meldingen, drie locaties getest op verdenking van Brucella canis, bij geen van de honden was de kweek positief, wel is er op één locatie een hond serologisch positief bevonden.
- In 2025 werden zes patiënten met brucellose gemeld, waarvan vijf infecties in het buitenland waren opgelopen en één in Nederland. In de afgelopen vijf jaar (2021-2025) zijn in totaal 32 patiënten (2-14 per jaar) gemeld.
Brucellose komt wereldwijd voor; slechts enkele landen hebben brucellose in de landbouwhuisdierenpopulatie effectief bestreden. Nederland is volgens de WOAH en andere officiële instanties sinds 1999 officieel vrij van brucellose. Brucellose wordt veroorzaakt door een bacterie van het geslacht Brucella. Brucella abortus veroorzaakt brucellose bij herkauwers, voornamelijk runderen, en wordt ook wel Abortus Bang genoemd. B. melitensis en B. ovis veroorzaken brucellose bij geiten en schapen, terwijl B. suis en B. canis brucellose veroorzaken bij respectievelijk varkens en honden. Brucellose bij dieren leidt voornamelijk tot reproductiestoornissen en abortus. Bij varkens wordt ook arthritis gezien en bij paarden kan brucellose tot een heel ander ziektebeeld leiden (fistels en builen aan nek en schoft). Brucella-soorten zijn echter niet strikt soort specifiek. Mensen zijn gevoelig voor met name B. melitensis, B. abortus, B. suis biovars 1 en 3, B. canis en in mindere mate voor B. ceti en B. pinnipedialis. Besmette dieren scheiden de bacterie uit in melk, urine, ontlasting, sperma, vaginale excreta en placentamateriaal.
Infecties bij mensen kunnen subklinisch, acuut of chronisch verlopen. Verschijnselen zijn koorts, hoofdpijn, malaise, moeheid, zweten en gewrichtsklachten (vooral door sacro-iliitis en spondylitis). Bij chronische brucellose treden daarnaast gebrek aan eetlust en gewichtsverlies op. Complicaties die kunnen optreden zijn endocarditis, ontsteking van de nieren, hersen(vlies)ontsteking, botontsteking en teelbalontsteking.1
In 2025 registreerde de NVWA in totaal 55 meldingen van verdenking van brucellose bij gehouden dieren, dat is redelijk vergelijkbaar met 2024.
Tabel 2.7.1 Aantal bedrijven met verdenkingen van brucellose (aantal positief) (Bron: NVWA)
| Verdenkingen van brucellose | 2016 | 2017 | 2018 | 2019 | 2020 | 2021 | 2022 | 2023 | 2024 | 2025 |
|---|---|---|---|---|---|---|---|---|---|---|
| B. abortus | 47 (0) | 49 (0) | 39 (0) | 35 (0) | 51(0) | 44 (0) | 33 (0) | 16 (0) | 17 (0) | 10 (0) |
| B. suis | 75 (0) | 81 (0) | 54 (0) | 62 (0) | 34 (0) | 44 (0) | 33 (0) | 17 (0) | 18 (0) | 27 (0) |
| B. melitensis | 5 (0) | 41 (0) | 40(0) | 24 (0) | 20(0) | 25 (0) | 29 (0) | 23 (0) | 11 (0) | 10 (0) |
| B. ovis | 3 (0) | 4 (0) | 3 (0) | 3 (0) | 0(0) | 0 (0) | 2 (0) | - | - | 1 (0) |
| Totaal | 130 | 175 | 157 | 124 | 105 | 113 | 100 | 56 | 46 | 48 |
Tabel 2.7.2 Aantal locaties met Brucella antistoffen (aantal kweek positief) (Bron: (Wageningen Bioveterinary Research))
| Aantal bedrijven met Brucella antistoffen per jaar | 2021 | 2022 | 2023 | 2024 | 2025 |
|---|---|---|---|---|---|
| B. canis | 16 (2) | 11 (3) | 2 (0) | 3 (0) | 7 (1) |
2.7.2 Brucellose bij dieren
2.7.2.1 Runderen
Sinds 1997 zijn er geen besmette runderen in Nederland gevonden en vanaf 1 augustus 1999 is Nederland officieel vrij van boviene brucellose. Ter bewaking van de vrij-status wordt een aantal controles uitgevoerd. Alle runderen aangeboden ter slachting worden individueel voor en na de slacht gecontroleerd. Tevens zijn veehouders verplicht bloedonderzoek uit te laten voeren door Royal (Gezondheidsdienst voor Dieren) (Gezondheidsdienst voor Dieren) bij elk rund dat verwerpt tussen dag 100 en 260 van de dracht. Dierenartsen, veehouders en laboratoria moeten een (klinische) verdenking verplicht melden aan de NVWA, die vervolgens de dieren onderzoekt. Runderen die aangeboden worden voor de export of worden ingezet voor reproductie worden vaak ook klinisch en serologisch onderzocht op brucellose. In 2025 zijn tien verdenkingsmeldingen (alle B. abortus) afgehandeld bij runderen. Al deze meldingen bleken negatief (Tabel 2.7.1).
2.7.2.2 Schapen en geiten
Brucellose bij schapen of geiten is in Nederland nog nooit vastgesteld. Ter bewaking van de vrij-status wordt er een aantal controles uitgevoerd die vergelijkbaar zijn met die van boviene brucellose. De controles bij schapen en geiten zijn echter minder uitgebreid dan bij runderen. In 2025 werden tien verdenkingen van B. melitensis en één verdenking van B. ovis bij schapen en geiten afgehandeld (Tabel 2.7.1). Ook bij deze meldingen werd bij nader onderzoek geen brucellose vastgesteld.
2.7.2.3 Varkens
Ter bewaking van de vrij-status vindt er ook bij varkens monitoring plaats. In het kader van de monitoring bij varkens die door de GD wordt uitgevoerd worden de positieve initiële uitslagen bij de NVWA gemeld. Deze B. suis-meldingen worden voornamelijk gedaan door Kunstmatige Inseminatie (KI)-varkensverenigingen en varkensfokkers. De inzet van reproductiemateriaal wordt standaard onderzocht en moet vrij zijn van brucellose voordat de dieren worden ingezet voor reproductie. Beren worden gescreend voor spermawinning, zeugen wanneer er afwijkingen zijn bij de geboorte (verwerpers). Bij een verdenking wordt eerst een confirmatie van de bloedmonsters uitgevoerd door WBVR. Als deze ook verdacht is, wordt door de NVWA nogmaals bloed afgenomen van het betreffende dier en (eventueel) koppelgenoten. In 2025 waren er in totaal 27 B. suis-meldingen bij varkens. Bij alle nadere onderzoeken werd de bacterie niet aangetroffen (Tabel 2.7.1).
2.7.2.4 Honden
In 2025 zijn er op zeven locaties verdenkingen van Brucella canis gemeld, hiervan zijn er drie getest middels PCR-onderzoek gecombineerd met kweek. Vanuit deze meldingen is er één hond positief getest met serologie, er zijn geen honden positief getest in de kweek (Tabel 2.7.2). Niet alle gemelde honden zijn getest doordat de klinische verschijnselen soms niet pasten bij Brucella canis. Ook waren er honden al door de dierenarts getest, als deze serologie negatief was, zijn ook geen officiële monsters genomen.
De trend is nog steeds dat er honden worden aangekocht uit risicolanden (ook om mee te fokken), wat een groter risico geeft op transmissie. De herkomst van potentiële puppy’s geboren in Nederland uit deze honden is mogelijk moeilijk te achterhalen. Bij de locatie met de hond met een positieve serologie is ook onduidelijk waar de originele besmetting kan zijn opgelopen.
2.7.2.5 Zeezoogdieren
De in de Nederlandse wateren voorkomende bruinvissen en zeehonden kunnen ook besmet zijn met Brucella.2,3 Het gaat dan om B. ceti, die specifiek bij bruinvissen en dolfijnen wordt gevonden en B. pinnipedialis bij zeehonden. In 2025 is er een verdenking van B. ceti bij een dwergvinvis (baleinwalvis van 8-9 meter) behandeld, deze testte negatief bij het referentielaboratorium WBVR.
2.7.3 Brucellose bij de mens
Humane besmetting vindt voornamelijk plaats door contact met besmette dieren, het drinken van rauwe melk of andere ongepasteuriseerde zuivelproducten. In Nederland worden sporadisch gevallen van menselijke besmettingen met Brucella gemeld, meestal na bezoek aan het buitenland of door consumptie van rauwmelkse zuivelproducten uit het buitenland. In 2025 zijn zes patiënten met brucellose gemeld. Het betrof vijf mannen en één vrouw, van wie de meeste (5) in de leeftijdscategorie 40-64 vielen en één in de categorie 65+. Dit aantal ligt in lijn met de meeste voorgaande jaren, waarin doorgaans slechts enkele gevallen per jaar werden gemeld, met uitzondering van 2024 waarin een hoger aantal werd waargenomen.
Bij twee patiënten werd B. melitensis vastgesteld. Beide infecties betroffen patiënten met chronische klachten, waarbij de ene infectie mogelijk jaren geleden in Eritrea was opgelopen en de andere mogelijk in Irak.
Bij één patiënt werd B. abortus serologisch vastgesteld op basis van een nabepaling. De infectie werd mogelijk in het voorgaande jaar in Spanje opgelopen via een onbekende bron.
Bij drie patiënten bleef de Brucella-soort onbekend. Eén van hen liep de infectie mogelijk op in Italië via voedselconsumptie, een tweede patiënt mogelijk via consumptie van dromedarisvlees in Tunesië, en bij de derde patiënt werd de infectie vermoedelijk in Nederland via een onbekende bron opgelopen.
In totaal werden vier van de zes patiënten opgenomen in het ziekenhuis.
Tabel 2.7.3 Aantal gemelde humane patiënten geïnfecteerd met Brucella spp. (2021-2025) (Bron: Osiris)
| Meldingen per jaar | 2016 | 2017 | 2018 | 2019 | 2020 | 2021 | 2022 | 2023 | 2024 | 2025 |
|---|---|---|---|---|---|---|---|---|---|---|
| Aantal | 4 | 2 | 5 | 7 | 3 | 2 | 6 | 4 | 14 | 6 |
| Opgelopen in Turkije/Irak | 1/0 | 0/0 | 1/1 | 0/2 | 2/0 | 0/0 | 1/0 | 3/0 | 2/3 | 0/1 |
Literatuur:
- (Rijksinstituut voor Volksgezondheid en Milieu). LCI Richtlijn Brucellose
- Maio et al., Identification and typing of Brucella spp. in stranded harbour porpoises (Phocoena phocoena) on the Dutch coast. Vet Microbiol 2014; 173(1-2):118-24
- Kroese et al., Brucella pinnipedialis in grey seals (Halichoerus grypus) and harbor seals (Phoca vitulina) in the Netherlands. J Wild Dis 2018; 54(3): 439-449
2.8 BSE
2.8.1 Hoofdpunten
- In 2025 zijn er geen BSE positieve runderen gevonden in Nederland.
BSE (boviene spongiforme encefalopathie) is een infectieziekte die voorkomt bij rundvee en behoort tot de groep van ‘overdraagbare spongiforme encefalopathieën’ (Engels: transmissible spongiform encephalopathies, TSE’s) of prionziekten. BSE wordt veroorzaakt door een ophoping van afwijkend gevouwen eiwitten (prionen) in de hersenen en het ruggemerg waardoor in de zenuwcellen microscopisch kleine vacuolen ontstaan, vandaar de naam 'spongiform'. De dieren gaan daardoor hersenverschijnselen vertonen waaronder afwijkend gedrag, trillen, moeilijk overeind komen en zwabberend lopen. Spongiforme encefalopathieën kennen over het algemeen een (zeer) lange incubatietijd omdat de ophoping van de afwijkende eiwitten zeer langzaam gaat. Het is aangetoond dat er een verband bestaat tussen BSE en het ontstaan van een variant van de ziekte van Creutzfeldt-Jakob (vCJD) bij de mens. Variant CJD werd voor het eerst beschreven in 1996 in Groot-Brittannië.1 In 2016 is tot nu toe het laatste geval van vCJD gemeld in het Verenigd Koninkrijk.2 In Nederland zijn drie mensen overleden ten gevolge van vCJD; het laatste geval dateert van 2008.
Door import van besmette koeien en besmet diermeel vanuit Groot-Brittanië is BSE waarschijnlijk al aan het eind van de jaren tachtig in Nederland geïntroduceerd. BSE is in Nederland een meldingsplichtige ziekte sinds 29 juli 1990 (zie paragraaf 2.2). Dierenartsen en veehouders zijn verplicht om dieren met verschijnselen van BSE te melden aan de (Nederlandse Voedsel- en Warenautoriteit). Deze meldingsplicht is de pijler van het zogenoemde passieve surveillancesysteem. Daarnaast kunnen dieren met verschijnselen worden gevonden bij de levende keuring op slachthuizen door medewerkers van de NVWA. Deze dieren worden vervolgens naar (Wageningen Bioveterinary Research), het nationaal referentieinstituut voor TSE’s, vervoerd waar een definitieve diagnose wordt gesteld. Een actief surveillancesysteem is vanaf eind 2000 ingevoerd, waarbij aanvankelijk alle gezonde slachtrunderen, in nood geslachte runderen en gestorven runderen op BSE werden getest. Gezien de afname van het aantal BSE gevallen in Europa is begin 2013 gestopt met het testen van gezonde slachtrunderen in een groot aantal Europese lidstaten, waaronder Nederland. Wat betreft de noodslachtingen en kadavers worden nog steeds alle dieren ouder dan 48 maanden getest. Van 1997 tot en met 2011 zijn in totaal 88 gevallen van BSE vastgesteld bij Nederlandse runderen.3
Van 2011 tot en met 2022 zijn er geen gevallen van BSE vastgesteld in Nederland (Tabel 2.8.1). Echter in januari 2023 is er sinds lange tijd weer een positief BSE rund gevonden middels de actieve surveillance. Het betrof hier een achtjarige koe met een zogenaamde atypische variant van BSE. Atypische BSE wordt niet veroorzaakt door opname van besmet voer maar wordt soms aangetroffen bij oudere dieren en gezien als een spontane misvouwing van het prion eiwit die incidenteel kan optreden, met name op hogere leeftijd. Voor Nederland geldt in 2025 daarom nog steeds de gunstigste risicostatus volgens de WOAH en de (Europese unie): een verwaarloosbaar BSE-risico.
Tabel 2.8.1 Aantal geteste runderen per jaar in het kader van de actieve BSE surveillance in Nederland (Bron: WBVR)
Aantal getest per jaar
| Gezonde slachtrunderen* | Noodslachtingen | Kadavers | |||
|---|---|---|---|---|---|---|
| Aantal getest | Positief | Aantal getest | Positief | Aantal getest | Positief | |
| 2016 | 14 | 0 | 5.385 | 0 | 49.173 | 0 |
| 2017 | 36 | 0 | 5.197 | 0 | 41.888 | 0 |
| 2018 | 30 | 0 | 5.024 | 0 | 45.276 | 0 |
| 2019 | 27 | 0 | 5.035 | 0 | 46.965 | 0 |
| 2020 | 0 | 0 | 5.695 | 0 | 54.413 | 0 |
| 2021 | 0 | 0 | 6.609 | 0 | 54.097 | 0 |
| 2022 | 0 | 0 | 7.358 | 0 | 49.834 | 0 |
| 2023 | 0 | 0 | 7416 | 0 | 57.318 | 1 |
| 2024 | 0 | 0 | 7.392 | 0 | 60.498 | 0 |
| 2025 | 0 | 0 | 7.491 | 0 | 49.070 | 0 |
Literatuur:
- Greener, M. vCJD: 30 years later. Progr Neurol Psych. 2015;19(3):28-30
- NCJDRSU. (2018) Creutzfeldt-Jakob disease in the UK (by calendar year)
- Website WBVR. Gekkekoeienziekte (BSE) - WUR
2.9 Burkholderia mallei
2.9.1 Hoofdpunten
- In 2025 zijn er geen bevestigde gevallen van infecties met Burkholderia mallei gemeld bij de (Nederlandse Voedsel- en Warenautoriteit) (Nederlandse Voedsel- en Warenautoriteit) op basis van exportdiagnostiek bij rond de 3000 paarden.
2.9.2 Onderzoek naar voorkomen van kwade droes in 2025
Hoewel kwade droes in Nederland officieel is uitgeroeid, blijft de ziekte endemisch in bepaalde regio’s van Zuid-Amerika, het Midden-Oosten en Azië. Bij import van paarden uit deze gebieden is een geldig gezondheidscertificaat vereist. Ook bij export van paarden vanuit Nederland wordt over het algemeen een vrijverklaring gevraagd gebaseerd op laboratoriumdiagnostiek (serologie). In dit kader onderzoekt Wageningen Bioveterinary Research (WBVR) jaarlijks circa 3000 serummonsters. Het gebeurt weleens dat er kruisreactiviteit optreedt in de serologie, waardoor een voorlopige verdenking ontstaat. Deze verdenkingen worden meestal uitgesloten na bevestiging door andere laboratoria. Op basis van deze exportdiagnostiek zijn in 2025 geen bevestigde gevallen van Burkholderia mallei gemeld bij de NVWA.
In 2025 zijn in Nederland geen humane gevallen gerapporteerd.
2.9.3 Achtergrondinformatie
Kwade droes of malleus (Engels: glanders) is een meldingsplichtige ziekte veroorzaakt door de bacterie Burkholderia mallei. De aandoening treft voornamelijk paardachtigen zoals paarden, ezels en muildieren, maar ook andere diersoorten zoals kamelen kunnen geïnfecteerd raken.1,2
Geïnfecteerde dieren vertonen (hoge) koorts, verlies van eetlust en, afhankelijk van de plaats van besmetting (neus, longen en/of huid), verschijnselen zoals neusuitvloeiing, kortademigheid, hoesten en onderhuidse ontstekingshaarden.1 Dit acute ziektebeeld wordt met name bij ezels en muildieren gezien. Bij paarden treedt meestal een chronisch ziektebeeld op met algemene malaise en intermitterend hoesten. In beide gevallen is de ziekte meestal dodelijk.2 Besmette dieren kunnen binnen enkele weken sterven, maar de ziekte kan ook chronisch worden, waarbij de bacteriën jarenlang kunnen worden verspreid. Ook mensen kunnen geïnfecteerd raken met de bacterie, hoewel dat zelden voorkomt. De verschijnselen zijn vaak aspecifiek: koortsperioden, hoofdpijn, moe, vergrote lymfeknopen en spierpijn.3 Zonder tijdige antibioticumbehandeling kan de ziekte levensbedreigend zijn. Een recente casus van een humane patiënt in Iran is beschreven in Nasiri et al, 2023.4
Literatuur:
- Wageningen University & Research: Kwade droes
- Spickler, A.R., Glanders factsheet. 2018, Iowa State University/OIE
- Van Zandt, K.E., M.T. Greer, and H.C. Gelhaus, Glanders: an overview of infection in humans. Orphanet J Rare Dis. 2013; 8:131
- Nasiri, M., et al., Glanders (Burkholderia mallei infection) in an Iranian man: A case report. IDCases.2023; 32:e01779
2.10 Campylobacteriose
2.10.1 Hoofdpunten
- In 2025 werden in totaal 4.856 campylobacteriosepatiënten geregistreerd in ISIS-AR. Dit is lager dan in de afgelopen jaren met 5.472 gevallen in 2024 en 5.199 in 2023. Het aantal gevallen in 2025 zal echter nog verder oplopen omdat nog niet alle laboratoria data aan ISIS-AR hebben geleverd.
- Van de humane Campylobacter isolaten die naar het (Rijksinstituut voor Volksgezondheid en Milieu) werden opgestuurd voor typering middels Whole Genome Sequencing, clusterden er 45%. Er werden 47 clusters gedetecteerd waarvan de grootste 21 humane isolaten omvatte.
Campylobacter spp. zijn een veel voorkomende oorzaak van maagdarminfecties. Infecties worden met name opgelopen door inname van besmet voedsel (al dan niet via kruisbesmetting) of drinkwater, contact met (feces van) besmette dieren of oppervlaktewater. Het merendeel van de infecties verloopt asymptomatisch. Als er wel ziekteverschijnselen optreden is dit met name gastro-enteritis, wat leidt tot buikpijn, diarree en bloed bij de ontlasting. Een griepachtig ziektebeeld kan hieraan voorafgaan. In de meeste gevallen stoppen de klachten vanzelf binnen een week. Bacteriëmie is zeldzaam, evenals postinfectieuze reactieve artritis en Guillain-Barré syndroom (auto-immuun reactie tegen perifere zenuwen). Campylobacter-infecties zijn het meest geassocieerd met pluimvee (48%), honden/katten (18%), rundvee (12%) en oppervlaktewater (9%).1 De bijdrage van reservoir-specifieke transmissieroutes via voedsel is beduidend lager dan de attributies naar de reservoirs aangezien andere routes van transmissie (bv. milieu) ook belangrijk lijken te zijn.
2.10.2 Humane campylobacteriose
2.10.2.1 Epidemiologische trend
Incidentele gevallen van humane campylobacteriose zijn, in tegenstelling tot in diverse andere Europese landen, in Nederland niet meldingsplichtig. Campylobacteriose is hier alleen meldingsplichtig indien het een humaan cluster van twee of meer gerelateerde gevallen betreft met een vermoedelijke oorsprong in consumptie van besmet voedsel of drinkwater. Trends in humane campylobacteriose worden verkregen uit het Infectieziekten Surveillance Informatie Systeem voor Antibiotica Resistentie (ISIS-AR), dat gegevens over antibioticaresistentie (o.a. voor Campylobacter spp.) verzamelt van een groot aantal medische microbiologische laboratoria.2
In 2017 werd het laagste aantal laboratorium bevestigde gevallen van campylobacteriose gevonden (n=4.812) sinds het begin van de registratie in 1993. Het aantal steeg echter in 2018 en 2019 (respectievelijk 5.096 en 5.177 gevallen) maar daalde aanzienlijk in 2020 (n=3.830) en 2021 (n=4.311) als gevolg van de COVID-19 pandemie. Dit aantal steeg echter weer gestaag van 4.875 in 2022, 5.199 in 2023 naar 5.472 in 2024.
In 2025 werden er 4.856 campylobacteriose gevallen gemeld in ISIS-AR. Dat is lager dan de voorgaande jaren. In 2025 hebben echter nog niet alle laboratoria data aan ISIS-AR geleverd, waardoor het aantal waarschijnlijk nog verder zal oplopen (Figuur 2.10.1). Van de gevallen in 2025 waren er 2.608 man (54%) en 2.245 vrouw (46%). Bij 3 gevallen was het geslacht onbekend. In 87 procent van de gevallen betrof het Campylobacter jejuni, 11 procent Campylobacter coli en 2 procent andere Campylobacter soorten. Deze soortenverdeling is vergelijkbaar met voorgaande jaren. Antibioticaresistentie (met name ciprofloxacine) bij Campylobacter blijft een zorg voor de publieke gezondheid. Gegevens over antibioticaresistentie worden elk jaar gerapporteerd in NethMap One Health.3
Figuur 2.10.1 Humane infecties met Campylobacter spp. zoals geregistreerd in ISIS-AR. De data van 2025 zijn nog niet compleet.
2.10.2.2 Kiemsurveillance
Om clusterdetectie mogelijk te maken is per 1 mei 2021 het Campylobacter sentinel kiemsurveillance project van start gegaan. Van alle ontvangen Campylobacter isolaten vanuit de zeven deelnemende laboratoria geografisch verdeeld over Nederland is sindsdien een selectie van 2.192 isolaten gemaakt op basis van seizoenspreiding, inzender en species, voor het uitvoeren van WGS. Op de WGS data wordt clusteranalyse gedaan met behulp van core genome Multi Locus Sequence Typing (cgMLST), om groepen patiënten te identificeren met identieke stammen. Van de geselecteerde isolaten was 89% C. jejuni en 11% C. coli. Van de humane Campylobacter isolaten ontvangen in 2025 clusterden 45% met tenminste één ander humaan isolaat. Ter vergelijking, voor Salmonella Enteritidis betrof dit 79% in 2024. Deze bevindingen suggereren dat Campylobacter meer sporadisch is dan Salmonella Enteritidis, wat erop wijst dat de totale blootstelling (en daaruit resulterende patiënten) het resultaat is van relatief veel verschillende kleinere bronnen. In 2025 werden er op basis van de WGS data 47 clusters geïdentificeerd met een mediane grootte van 2 isolaten (variërend van 2 tot en met 21 isolaten). Voor elk cluster geldt dat deze clusters in werkelijkheid uit veel meer patiënten bestaan, aangezien slechts een deel gediagnosticeerd wordt en deze surveillance niet alle laboratoria omvat. In totaal werden er van 2021-2025 237 clusters geïdentificeerd, waarvan 66% meer dan één jaar werden gezien en 6% in alle vijf de jaren. Deze bevindingen duiden op zowel diverse afzonderlijke bronnen als persisterende bronnen, wat de complexiteit van de Campylobacter-bronopsporing benadrukt.
2.10.3 Campylobacter bij dieren en dierlijke producten
Naast surveillance van Campylobacter bij de mens vindt ook monitoring plaats van dieren en dierlijke producten binnen verschillende programma’s en projecten.
2.10.3.1 Monitoring van pluimvee bij de slacht
De Vereniging van de Nederlandse Pluimvee Verwerkende Industrie (NEPLUVI) en het ministerie van Volksgezondheid, Welzijn en Sport (VWS) hebben jaren geleden de beheersing van Campylobacter benoemd tot een speerpunt van hun beleid. Dit is onder andere tot uiting gekomen in de Campylobacter convenanten die de overheid met de pluimvee verwerkende industrie is aangegaan. In het kader hiervan monitoren pluimveeslachterijen wekelijks het Campylobacter-niveau. Resultaten van de bemonstering worden jaarlijks gepubliceerd op de NEPLUVI website. Voor vleeskuikenslachterijen geldt een proceshygiënecriterium, PHC 2.1.9. Volgens dit criterium mogen er per 1-1-2025 maximaal 10 van 50 uitslagen groter zijn dan 1000 kve/gr (kolonievormende eenheden per gram). Er moeten wekelijks van 15 karkassen nekvel monsters worden bemonsterd en onderzocht. In het kader van verificatie werden in 2025 door de (Nederlandse Voedsel- en Warenautoriteit) 278 monsters van nekvellen op 13 slachterijen genomen, welke geanalyseerd zijn door WFSR. In 7,2% van de gevallen werden tellingen met meer dan 1.000 kve/gr gevonden.
2.10.3.2 Landbouwhuisdieren surveillance programma
In het kader van het gezamenlijke RIVM-NVWA-WFSR project ‘Surveillance Landbouwhuisdieren’ zijn in 2024-2025 bedrijven met vleesvarkens bezocht. Hierbij is op 210/214 (98,1%) van de bezochte vleesvarkenbedrijven Campylobacter aangetoond in mestmonsters. Van de isolaten was 98,0% C. coli, 0,2% C. jejuni en 1,7% C. hyointestinalis. Op enkele bedrijven werd meer dan één soort Campylobacter aangetroffen.
2.10.3.3 Surveillance van dierlijke producten in de detailhandel
Het percentage partijen vers kippenvlees (dat door de NVWA bemonsterd is in de detailhandel en geanalyseerd is door WFSR) dat Campylobacter bevat, varieerde tussen 2021 en 2025 tussen 33% en 51% (Tabel 2.10.1). Van alle tellingen van Campylobacter in 404 monsters kipvlees in 2025 was 1,9% >10 kve/gr, en in de detectiemethode was 49,4% positief.
Bij (gekoelde) bereidingen van pluimvee werd in 2025 in 21,1% van de 190 monsters Campylobacter aangetroffen. Het percentage van de partijen waarin Campylobacter wordt aangetroffen is het algemeen beduidend lager in (gekoelde) bereidingen van kip dan in vers (gekoeld) pluimveevlees doordat bereidingen van pluimveevlees een intensievere bewerking ondergaan dan vers pluimveevlees en toevoegingen bevatten (zout/kruiden) waardoor Campylobacter mogelijk afsterft of lastiger te kweken is. In vers vlees anders dan pluimveevlees wordt veel minder, maar zeker niet verwaarloosbaar, Campylobacter gevonden (Tabel 2.10.1). In vers vlees van rund, lam en varken werden in 2025 lage percentages Campylobacter gevonden van respectievelijk 0,8%, 4,9% en 0,7%. In 2025 werden 38 monsters vlees van niet alledaagse diersoorten uit de detailhandel onderzocht, zoals eend, hert, konijn en zwijn, waar in 31,6% van de monsters Campylobacter werd aangetoond, allen uit eendenvlees (12/16).
Bij mosselen werd bij 65 onderzochte monsters in 12,3% van de monsters Campylobacter aangetoond en in 3,8% van de 53 oestermonsters, dit betrof meestal C. lari of C. peloridis.
Naast pluimvee, vlees en vis/schaal-/schelpdieren zijn er ook nog andere voedselmatrices onderzocht op Campylobacter zoals groenten, kant-en-klaar salades, champignons en groentepakketten, waarbij Campylobacter in 2 monsters, bami/nasi- en macaroni/spaghetti- groenten werd aangetoond (Tabel 2.10.1).
Tabel 2.10.1 Campylobacter spp. in vlees en producten in de detailhandel (Bron: Monitoringprogramma NVWA, analyses uitgevoerd door WFSR)
| Campylobacter spp in vlees en producten per jaar | 2021 | 2022 | 2023 | 2024 | 2025 | |||||
|---|---|---|---|---|---|---|---|---|---|---|
| in aantallen en procenten | N | % | N | % | N | % | N | % | N | % |
| Kip (vers) | 318 | 33,0 | 178 | 33,1 | 185 | 39,5 | 404 | 50,5 | 206 | 49,4 |
| Pluimvee (bereidingen) | 303 | 14,9 | 177 | 20,9 | 196 | 21,1 | 205 | 19,5 | 190 | 21,1 |
| Kalkoen (vers) | 15 | 20,0 | 8 | 12,5 | 7 | 28,6 | 21 | 14,3 | 17 | 11,8 |
| Rund en kalf | - | - | 175 | 0,0 | 282 | 0,0 | 284 | 0,0 | 439 | 0,7 |
| Varken | - | - | 167 | 1,2 | 289 | 0,0 | 274 | 0,7 | 276 | 0,7 |
| Lam | 302 | 1,7 | 162 | 1,5 | 141 | 4,2 | 178 | 1,1 | 173 | 4,0 |
| Schaap | - | - | - | - | 1 | 0,0 | - | - | - | - |
| Geit | - | - | - | - | 1 | 0,0 | 1 | 0,0 | 1 | 0,0 |
| Niet alledaagse vleesssoorten | 49 | 16,3 | 34 | 23,5 | 42 | 21,4 | 52 | 32,7 | 38 | 31,6 |
| Mosselen | 70 | 30,0 | 71 | 32,4 | 64 | 23,7 | 64 | 25,0 | 65 | 12,3 |
| Oesters | - | - | - | - | - | - | - | 131 | 13,0 | |
| RTE vis/schaal/schelpdieren | - | - | 15,0 | 0,0 | 20 | 0,0 | 20 | 10 | 10,0 | |
| Groente rauw | 952 | 0,0 | 835 | 0,0 | 925 | 0,0 | 876 | 0,3 | 329 | 0,0 |
| Maaltijdsalades | 294 | 0,3 | 177 | 0,0 | 185 | 0,0 | 186 | 0,0 | 178 | 0,0 |
| Wokgroenten | 296 | 0,0 | 177 | 0,0 | 188 | 0,5 | 180 | 0,0 | 174 | 1,1 |
| Paddenstoelen | 101 | 0,0 | 85 | 0,0 | 93 | 0,0 | 87 | 0,0 | 89 | 0,0 |
Literatuur:
- Mughini-Gras, L., et al., Sources and transmission routes of campylobacteriosis: A combined analysis of genome and exposure data. J Infect. 2021; 82(2): 216-226
- Infectieziekten Surveillance Informatie Systeem-Antibiotica Resistentie
- Franz. E., et al., NethMap One Health 2025. Bilthoven: RIVM; 2025. RIVM rapport 2025-0122.
2.11 Echinokokkose
2.11.1 Hoofdpunten
- Er is bij 48 nieuwe patiënten in 2025 echinokokkose aangetoond, waarvan bij twee E. multilocularis.
- De eerste resultaten van onderzoek bevestigen de aanwezigheid van E. multilocularis-DNA op zachtfruit en lintwormen bij vossen in Limburg.
2.11.2 Wat is echinokokkose?
Echinokokkose is een parasitaire ziekte die wordt veroorzaakt door de larven van kleine lintwormen die behoren tot het geslacht Echinococcus. Er zijn vier Echinococcus-soorten bekend die bij mensen ziekte kunnen veroorzaken:
- E. granulosus sensu lato (kleine hondenlintworm)
- E. multilocularis (vossenlintworm)
- E. oligarthrus
- E. vogeli
Alle Echinococcus-soorten hebben carnivoren als eindgastheer. In Europa komen E. granulosus sensu lato en E. multilocularis voor. Deze twee soorten bespreken we hieronder.
2.11.2.1 E. granulosus sensu lato
E. granulosus sensu lato is een lintworm van 2 tot 7 mm groot, die voorkomt in de dunne darm van honden en hondachtigen. Deze dieren zijn eindgastheer voor de lintworm. Dat wil zeggen dat zij het volwassen stadium van de lintworm in de darm hebben. In de ontlasting van de honden en hondachtigen kunnen dan eitjes van de lintworm worden gevonden. Die eitjes krijgen andere dieren binnen via bijvoorbeeld besmet voedsel. Zij kunnen zo tussengastheer worden. Bij tussengastheren vormen zich vooral in de lever en longen ingekapselde cysten met vocht en tussenschotten. Honden en hondachtigen krijgen de (larven van de) lintworm binnen door het eten van een besmette tussengastheer.
E. granulosus s.l. is een complex dat momenteel is ingedeeld in vijf soorten en verschillende genotypen (G1-G11).1,2 Deze genotypen verschillen in verspreidingsgebied en tussengastheer:
- Genotypen 1, 2 en 3 worden E. granulosus sensu stricto genoemd. Deze genotypen zijn het meest ziekmakend voor mensen en komen wereldwijd voor. In Europa is E. granulosus sensu stricto endemisch rond het Middellandse Zeegebied en en worden cysten vooral bij schapen gevonden.
- E. equinus, voorheen E. granulosus G4, heeft vooral paarden en andere paardachtigen als tussengastheer. Overdracht naar mensen is bij dit genotype vrijwel afwezig.
- E. ortleppi, voorheen E. granulosus G5, wordt nog zelden gevonden in Europa en Nederland. Dit genotype vormt fertiele cysten bij met name rundvee als tussengastheer. Er zijn sporadische gevallen bij de mens gerapporteerd.
- E. canadensis omvat een cluster met genotypen 6 tot en met 10.3
- G6/G7 waarbij G6 voorkomt bij geiten en kamelen in Noord-Afrika en het Midden-Oosten en G7 in Zuid-Europa met varkens als tussengastheer.
- G8 en G10 in Noord-Europa met hertachtigen, waaronder rendieren, als tussengastheer.
- E. felidis (G11) komt voor ten zuiden van de Sahara in Afrika en heeft leeuwen en wrattenzwijnen als voornaamste eind- en tussengastheer.
2.11.2.2 E. multilocularis
E. multilocularis is een lintworm van 1,5 tot 4,5 mm groot, die voorkomt in de dunne darm van wilde carnivoren, zoals vossen, wolven en wasbeerhonden, maar ook honden en katten. Deze carnivoren zijn eindgastheer. In Nederland en Europa zijn vossen de belangrijkste eindgastheer van deze lintworm.
Kleine knaagdieren zijn meestal de tussengastheer van E. multilocularis. Bij tussengastheren groeit het larvale stadium van E. multilocularis uit in de organen, vooral vanuit de lever. Dit zorgt voor een doorgroeiende structuur, eventueel met holtes gevuld met vocht of pus.
2.11.3 Infectie bij de mens
Een eindgastheer scheidt eitjes van de lintworm uit met de ontlasting. Mensen kunnen geïnfecteerd raken als ze deze eitjes binnenkrijgen. Vervolgens kunnen alle genoemde Echinococcus-soorten zich bij de mens ontwikkelen tot het larvale stadium: de blaasworm.4 De asymptomatische incubatietijd van deze lintworminfecties bij de mens varieert maar is doorgaans lang, van 1 jaar tot vele jaren bij E. granulosus s.l. en 5 tot 15 jaar bij E. multilocularis. Bij een immuun-gecompromitteerde patiënt kan het korter duren.
Echinococcus kan bij mensen verschillende ziektes veroorzaken:
- E. granulosus sensu lato veroorzaakt cysteuze echinokokkose, ook wel hydatidose genoemd.
- E. multilocularis veroorzaakt alveolaire echinokokkose.
2.11.3.1 E. granulosus-infectie
Bij E. granulosus-infecties bij mensen ontstaan één of meerdere cysten. Deze bestaan uit met vocht gevulde blazen, in de lever, longen of soms in andere organen. Sommige cysten hebben schotten en bevatten dochtercysten. De cysten kunnen erg groot worden (> 20 cm), wat mechanische klachten kan geven door verdringing van andere organen. Bij het openbarsten van een cyste kan een anafylactische shock optreden en kan de infectie zich verspreiden naar de buikholte of andere organen.
2.11.3.2 E. multilocularis-infectie
E. multilocularis-infecties bij mensen presenteren zich anders dan E. granulosus-infecties. De afwijking met daarin de larve (tussengastheerstadium) begint bijna altijd in de lever en groeit invasief door naar andere organen. Er is meestal geen cyste, maar een laesie die sterk aan een maligniteit doet denken, met verkalkingen, necrose, holtes, enzovoorts. Afhankelijk van de locatie en de uitbreiding kunnen er klachten ontstaan (doorgroei in longen, bloedvaten of zenuwen).
2.11.4 Echinokokkose bij dieren
Echinokokkose bij dieren is meldingsplichtig, maar niet bestrijdingsplichtig. In Tabel 2.11.1 staat het aantal dieren dat de afgelopen jaren op de ziekte getest is en het aantal dieren dat positief testte.
Tabel 2.11.1 Echinokokkose bij dieren, aantal positieve en geteste dieren (Bron: (Nederlandse Voedsel- en Warenautoriteit), (Gezondheidsdienst voor Dieren), (Rijksinstituut voor Volksgezondheid en Milieu))
| Echinokokkose bij dieren per jaar | 2021 | 2022 | 2023 | 2024 | 2025 |
|---|---|---|---|---|---|
| Runderen (NVWA/RIVM) | - | - | 0/1 | - | - |
| Schapen (NVWA/RIVM) | - | - | 1/1a | - | - |
| Paarden | - | - | 1/1a | - | - |
| Honden | - | - | 2/2b | - | - |
| Vossen | 2/46b,c | 0/13e | 0/7e | 6/30 b,d, 0/7e | 25/151b,d, 1/14b,e |
| Wasbeerhonden | 0/10 | - | 0/25 | 0/14 | 0/14 |
| Wolven | - | - | 0/5 | 0/19 | 0/24 |
| Wasberen | - | - | - | - | 0/14 |
2.11.4.1 E. granulosus
Als tussengastheer van E. granulosus komt het blaaswormstadium voor bij verschillende soorten landbouwhuisdieren, zoals het rund, schaap en varken. Blaaswormen bevinden zich bij deze dieren meestal in de lever of longen, of in beide organen. Door het ontbreken van zowel klinische verschijnselen als diagnostische mogelijkheden bij het levende dier, ligt de focus van bewaking en beheersing in de slachtfase. Detectie is afhankelijk van inspectie en palpatie tijdens de slacht. Wanneer bij slachtdieren een Echinococcus-verdachte cyste wordt vastgesteld, wordt deze microscopisch onderzocht en vervolgens met PCR bevestigd door het NRL-Parasieten bij het RIVM.
Van runderen en kleine herkauwers moeten, volgens de NVWA-werkvoorschriften en conform de Europese Unie-regelgeving (EU 2019/627), de ingewanden van borst- en buikholte worden afgekeurd voor humane consumptie wanneer er macroscopisch waarneembare blazen in één of meerdere organen aanwezig zijn. Organen van runderen zonder macroscopisch waarneembare besmetting met echinokokkose, maar afkomstig uit echinokokkose-risicolanden (Roemenië, Bulgarije, Hongarije en Tsjechië) worden slechts geschikt verklaard voor menselijke consumptie onder voorwaarde dat ze een koude-behandeling ondergaan (-20°C gedurende minimaal twee dagen). Deze werkvoorschriften moeten voorkomen dat besmette (delen van) runderen in de voedselketen terechtkomen.5
Autochtone gevallen van E. granulosus komen sinds decennia niet meer voor in Nederland. Dit komt door goede slachthuisinspectie en -hygiëne (het afkeuren van besmette organen) en de introductie van droog- en blikvoer voor honden, dat door voldoende hittebehandeling geen risico vormt. De import van zowel slachtrunderen als honden uit endemische gebieden, en de toenemende populariteit van rauwe verse orgaanvleesvoeding van onbekende oorsprong voor honden, zoals BARF (Bones and Raw Food) of KVV (Kant-en-klaar Vers Vlees), vormen nog wel mogelijke risico’s.
In 2025 zijn er door de NVWA géén echinokokkoseverdenkingen bij slachtdieren naar het NRL-Parasieten bij het RIVM gestuurd (Tabel 2.11.1).
2.11.4.2 E. multilocularis
In 1996-1997 is vossenlintworm voor het eerst aangetoond bij enkele vossen in delen van Zuid-Limburg en Oost-Groningen.6 Vervolgens is op meerdere momenten vossenonderzoek gedaan. Daarbij werd in 2012-2013 in de omgeving van Maastricht een sterke toename van de prevalentie gevonden bij vossen7, terwijl in 2016-2017 in Groningen en Drenthe geen toename werd gezien.8
Vossen en andere wilde carnivoren (wolven, wasbeerhonden, jakhalzen) die ter sectie worden aangeboden bij het DWHC, worden door het RIVM met microscopie en/of met qPCR onderzocht op vossenlintworm. Van de vossen, wasberen, wasbeerhonden en wolven die in 2025 vanuit het DWHC zijn onderzocht had er één vossenlintworm (Tabel 2.11.1). Het ging om een vos afkomstig uit Noordoost-Groningen.
De snelheid van de verspreiding van E. multilocularis in Nederland kan worden beïnvloed door de komst van nieuwe gastheren, zoals bijvoorbeeld de wasbeerhond (Nyctereutes procyonoides). Deze invasieve exoot wordt steeds vaker in Nederland gezien. Er zijn vanaf 2013 wasbeerhonden uit verschillende provincies onderzocht op vossenlintworm (Tabel 2.11.1). Alleen in 2014 is één positief dier gevonden in Flevoland met Magnetic Capture qPCR.9
2.11.4.2.1 E. multilocularis-onderzoek zachtfruit en vossen
In 2022 is binnen het One Health European Joint Programme (One Health EJP)-project MEmE10 een pilot uitgevoerd in tien Europese landen (waaronder Nederland), Tunesië en Pakistan, waarbij zachtfruit is onderzocht uit endemische regio’s. In diverse landen werd E. multilocularis-DNA aangetoond op zachtfruit.11 Naar aanleiding van deze resultaten is eind 2023 een meerjarig onderzoek naar E. multilocularis op zachtfruitproducten en bij vossen in Limburg gestart. In 2024 zijn bij veertien zachtfruitbedrijven in Zuid- en Midden-Limburg fruit- en grondmonsters verzameld en cameravallen geplaatst. Er is met de cameravallen veel wild waargenomen, waaronder op zes bedrijven ook vossen.
Bij vijf van de veertien bedrijven werd DNA van de vossenlintworm op één of meer fruitmonsters aangetoond. Het ging om 10 van de 220 fruitmonsters in totaal. Het aantonen van DNA hoeft niet te betekenen dat er besmettelijke eitjes aanwezig waren. Bovendien was de concentratie van het DNA steeds heel laag. Daardoor is moeilijk te zeggen wat dit betekent voor het risico op vossenlintworm voor mensen. Algemeen advies is om fruit en groenten altijd eerst goed te wassen en indien mogelijk te schillen of koken. Dit verkleint de kans om ziekteverwekkers, zoals parasieten, binnen te krijgen.
Het vossenonderzoek is uitgevoerd in de winters van 2024-2025 en 2025-2026. De voorlopige resultaten bevestigen dat vossenlintworm endemisch is bij vossen in Zuid-Limburg (Tabel 2.11.1). Vossenlintworm werd ook aangetoond bij één van 129 onderzochte vossen uit Midden-Limburg.
2.11.5 Echinokokkose bij mensen
Echinokokkose bij mensen is in Nederland niet meldingsplichtig. Dit geldt zowel voor E. granulosus als voor E. multilocularis. In Nederland wordt in vier laboratoria serologische en moleculaire diagnostiek verricht naar Echinococcus granulosus:
- in het EMC in Rotterdam
- in het AUMC in Amsterdam
- in het (Leids Universitair Medisch Centrum) in Leiden
- door het (Centrum Infectieziektebestrijding (onderdeel van het RIVM))-RIVM in Bilthoven
Deze laboratoria geven nieuwe positieve patiënten op vrijwillige basis door aan het CIb-RIVM. De serologische diagnostiek naar E. multilocularis wordt in Nederland alleen bij het RIVM uitgevoerd.
2.11.5.1 Cysteuze echinokokkose bij mensen
E. granulosus-infecties zijn vaak chronische aandoeningen. Patiënten worden daarom langdurig serologisch gevolgd en het totaal aantal positief bevonden patiënten is daardoor veel groter dan het aantal nieuwe patiënten. In dit overzicht hebben we in principe alleen de nieuwe patiënten opgenomen. Tot en met 2017 was het mogelijk om de patiënten te ontdubbelen: dat wil zeggen alle patiënten die in meerdere laboratoria werden getest konden worden achterhaald. Maar door de nieuwe privacywetgeving (AVG) is dit nu niet meer mogelijk. Het aantal nieuwe patiënten zal daardoor mogelijk overschat zijn.
In 2025 werd bij in totaal 48 nieuwe patiënten de diagnose E. granulosus vastgesteld (Figuur 2.11.2). De leeftijd varieerde van 10 tot >65 jaar. Navraag bij de centra die betrokken zijn bij de diagnostiek voor echinokokkose leert dat voor zover bekend nog steeds de meeste patiënten afkomstig zijn uit het Middellandse Zeegebied (met name Marokko en Turkije) en Oost-Europa. Sinds 2015 worden ook relatief veel patiënten uit Syrië en Irak gezien.
Figuur 2.11.1 Nieuwe patienten met E. granulosus in 2025 in Nederland naar leeftijd (Bron: EMC, LUMC, (Academisch Medisch Centrum Amsterdam), RIVM)
2.11.5.2 Alveolaire echinokokkose bij mensen
Tot op heden zijn in Nederland twaalf patiënten bekend bij wie een infectie met E. multilocularis is vastgesteld. Bij twee van deze patiënten werd in 2025 een E. multilocularis infectie aangetoond met behulp van serologie, maar van deze patiënten was geen materiaal beschikbaar voor moleculaire bevestiging. Het is onduidelijk of deze infecties in Nederland zijn opgelopen.
Literatuur:
- Romig, T., en Wasserman, M., Echinococcus species in wildlife. International Journal for Parasitology: Parasites and Wildlife. 2024; 23: 100913
- Casulli, A., et al., Species and genotypes belonging to Echinococcus granulosus sensu lato complex causing human cystic echinococcosis in Europe (2000–2021): a systematic review. Parasites & Vectors. 2022; 15:109
- Laurimäe, T., et al., Molecular phylogeny based on six nuclear genes suggests that Echinococcus granulosus sensu lato genotypes G6/G7 and G8/G10 can be regarded as two distinct species. Parasitology. 2018; 145(14):1929-1937
- (Rijksinstituut voor Volksgezondheid en Milieu). LCI-Richtlijn Echinokokkose. 2000, RIVM: Bilthoven
- Spierenburg, M.A.H., et al., Risico op herintroductie van Echinococcus granulosis in Nederland door import van runderen en honden uit endemische gebieden. Tijdschr Diergeneeskd. 2017; 142(7):30-35.
- van der Giessen, J.W., et al., Detection ofEchinococcus multilocularis in foxes in The Netherlands. Vet Parasitol. 1999; 82(1):49-57.
- Maas, M., et al., Significant increase of Echinococcus multilocularis prevalence in foxes, but no increased predicted risk for humans. Vet Parasitol. 2014; 206(3-4):167-72.
- Maas, M., et al., Vossenlintwormonderzoek in Groningen en Drenthe : 2016-2017. 2017, Bilthoven: RIVM. Rapport 2017-0157
- Maas, M., et al., First findings of Trichinella spiralis and DNA of in wild raccoon dogs in the Netherlands. Int J Parasitol Parasites Wildl. 2016; 5(3):277-279.
- One Health EJP MEmE: Multi-centre study on Echinococcus multilocularis and Echinococcus granulosus s.l. in Europe: development and harmonisation of diagnostic methods in the food chain.
- Umhang, G., et al., Detection of Echinococcusspp. and other taeniid species in lettuces and berries: Two international multicenter studies from the MEmE project. Int J Food Microbiol. 2025; 430: 111059.
2.12 Leptospirose
2.12.1 Hoofdpunten
- In 2025 werden in totaal 104 leptospirose patiënten gemeld, waarvan 52 de infectie opliepen in Nederland. Hiervan was voor 49 patiënten een ziekenhuisopname nodig, voor 16 patiënten zelfs een opname op de intensive care.
- Geen patiënten overleden als gevolg van de ziekte.
2.12.2 Achtergrondinformatie
Leptospiren kunnen worden geclassificeerd in pathogene (P1 en P2 clades) en niet-pathogene of saprofytische (S1 en S2 clades) species. De niet-pathogene species (voorheen Leptospira biflexa sensu lato) komen van nature voor in water en modder. De pathogene species (voorheen Leptospira interrogans sensu lato) kunnen leptospirose veroorzaken bij mensen en dieren. Vooral knaagdieren, koeien en honden kunnen reservoir zijn voor deze pathogene leptospiren. In ratten is aangetoond dat deze leptospiren biofilms vormen in de nieren van deze gastheer. In het milieu kunnen zowel pathogene als saprofytische leptospira biofilms vormen.
Besmetting kan optreden door contact met water of grond die verontreinigd is met leptospiren afkomstig uit de urine van geïnfecteerde dieren, of door direct contact met hun urine of andere lichaamsvloeistoffen. Daarnaast kan besmetting plaatsvinden via de consumptie van besmet water of voedsel, het drinken van rauwe melk van geïnfecteerde dieren, of het inademen van besmette aerosolen. Voor zowel honden als mensen vormt met rattenurine verontreinigd oppervlaktewater en de omgeving hiervan de belangrijkste risicofactor, met name na hevige regenval, overstromingen of andere natuurrampen.
Leptospiren dringen actief het lichaam binnen via wonden in de huid of via de slijmvliezen van ogen, neus en mond. Leptospirose bij mensen kan zich uiten in een breed scala aan symptomen. Dit varieert van een milde griepachtige ziekte tot ernstige klinische verschijnselen zoals geelzucht, nierfalen en bloedingen (ziekte van Weil), of het leptospirose pulmonale hemorragiesyndroom (LPHS), dat dodelijk kan zijn. De meest voorkomende symptomen in Nederland zijn koorts, spierpijn, hoofdpijn, rillingen, diarree, braken en verminderde urineproductie.
2.12.3 Leptospiren bij mensen
In de afgelopen 15 jaar hebben we een algehele toename gezien van het totale aantal leptospirosepatiënten dat in Nederland is gediagnosticeerd. In 2014 was er een bijna vijfvoudige stijging van het aantal leptospirosepatiënten dat de infectie in Nederland opliep (n=60) vergeleken met de periode 2010-2013. In de jaren daarna werd een graduele afname gezien, totdat er in 2019 57 autochtone infecties werden gediagnosticeerd. In 2020 (n=56), 2021 (n=49) en 2022 (n=49) werd maar een beperkte afname gezien. In 2023 steeg het aantal autochtone leptospirose patiënten weer naar 74 en dit bleef hoog in 2024 met 68. Het aantal reisgerelateerde patiënten vanaf 2014 varieerde tot 2018 van 28 tot 49, in 2014 (n=37), 2015 (n=45), 2016 (n=49), 2017 (n=40), 2018 (n=28), waarna in 2019 het aantal ineens sterk steeg (n=67). De daaropvolgende twee jaren hadden weinig reisgerelateerde patiënten, vanwege de COVID-19 reisrestricties, 2020 (n=8), 2021 (n=9). In de jaren daarna is het aantal weer langzaam aan het stijgen, met 2022 (n=42), 2023 (n=48) en 2024 (n=60).
In 2025 werden in totaal 104 leptospirose patiënten gemeld, waarvan 52 (50%) de infectie opliepen in Nederland en 50 (48%) in het buitenland. Van twee patiënten was het onbekend waar ze de infectie opliepen. Het merendeel van de patiënten was man (n = 68, 65%), wat gebruikelijk is voor leptospirose. De mediane leeftijd was 40,5 jaar (spreiding: 5-81 jaar). Net zoals voorgaande jaren was bij het merendeel van de patiënten die de infectie in Nederland opliepen (n = 49, 94%) ziekenhuisopname nodig, waarvan 16 (31%) patiënten op de intensive care. Van de reisgerelateerde patiënten waren er 42 (84%) opgenomen in het ziekenhuis, waarvan 4 (8%) op de intensive care. Geen patiënten overleden als gevolg van de ziekte.
Figuur 2.12.1 Aantal gevallen van leptospirose naar land van besmetting, 2015-2025
Tabel 2.12.1 Overzicht van het aantal positieve leptospirose diagnoses en de meest voorkomende serogroepen (Bron: surveillance gegevens Osiris en Expertisecentrum Leptospirose)
| Jaar | 2021 n (%) | 2022 n (%) | 2023 n (%) | 2024 n% | 2025 n% |
|---|---|---|---|---|---|
| Aantal bevestigde patiënten | 58 | 91 | 122 | 128 | 104 |
| Aantal mannen | 46 (79) | 65 (71) | 98 (80) | 97 (76) | 68 (65) |
| Infectie opgelopen in Nederland | 49 (84) | 49 (54) | 74 (61) | 68 (53) | 52 (50) |
| Beroepsmatige infecties in Nederland | 13 (22) | 7 (14) | 16 (13) | 8 (6) | 10 (10) |
| Infecties in Zuidoost Azië/Thailand | 0 (0) | 22 (55) | 28 (64) | 34 (59) | 13 (13) |
| Serogroep* | |||||
| Icterohaemorrhagiae | 20 | 14 | 15 | 13 | 5 |
| Grippotyphosa | 2 | 2 | 5 | 1 | 1 |
| Javanica | 1 | 1 | |||
| Sejroe | 1 | ||||
| Sejroe/Hebdomadis/Mini complex | 6 | 2 | 1 | 1 | |
| Australis | 1 | 1 | 1 | ||
| Australis/Ictohaemorrhagiae | 1 | ||||
| Australis/Autumnalis | 1 | ||||
| Autumnalis | 1 | ||||
| Pyrogenes/Manhao | 1 | ||||
| Celledoni | 1 | ||||
| Pomona | 2 | 1 | 3 | 1 | |
| Bataviae | 1 | ||||
| Panama | 1 | ||||
| Tarassovi | 1 | ||||
| Javanica/Celledoni | 1 | ||||
| Onbekend | 32 | 66 | 99 | 105 | 91 |
Zoals gebruikelijk nam het aantal patiënten toe in juli en weer af in oktober. De piek van het aantal patiënten was in juli, augustus en september met respectievelijk 13, 31 en 13 patiënten. In totaal liepen tien (10%) patiënten leptospirose op tijdens werk, voornamelijk bij werkzaamheden waarbij contact was met water/modder of (in)direct contact met muizen/ratten. Eén persoon was mogelijk tijdens werkzaamheden als dierenartsassistente besmet geraakt via een pup die ook leptospirose had, maar dit kon niet worden bevestigd. Het merendeel van de infecties in Nederland vond plaats via oppervlaktewater en/of modder (n = 35, 67%), zoals tijdens zwemmen, beroepsmatige werkzaamheden en in mindere mate tuinieren. Zes patiënten liepen leptospirose op via direct contact met ratten of muizen en/of hun ontlasting, waarvan één waarschijnlijk door contact met een tamme huisdierrat. Van 11 patiënten kon de meest waarschijnlijke besmettingsbron niet bepaald worden. De reisgerelateerde patiënten waarvan de bron van besmetting bekend was (n = 45) liepen de infectie allemaal op via oppervlaktewater en/of modder. Zij liepen de infecties voornamelijk op in Zuidoost Azië (n = 27, 54%), voornamelijk Indonesië (n = 11) en Thailand (n=10), gevolgd door Zuid Amerika (n=9, 18%), Europa (n = 8, 16%) en Centraal Amerika/Cariben (n = 4, 8%).
Van de autochtone gevallen kon in 7 gevallen de vermoedelijk infecterende serogroep worden bepaald: Icterohaemorrhagiae (n=6)) en Pomona (n=1). Bij dertien autochtone patiënten waar geen serogroep van bepaald kon worden, was het wel mogelijk om op basis van een positieve PCR een uitspraak te doen over het Leptospira-species: 12/13 behoorden tot Leptospira interrogans en 1/13 tot Leptospira kirschneri. In Nederland opgelopen infecties met L. interrogans wijzen meestal naar serogroep Icterohaemorrhagiae (met als reservoir ratten) en met L. kirschneri naar serogroep Grippotyphosa (met als reservoir muizen). Van de geïmporteerde gevallen kon voor zeven patiënten de vermoedelijk infecterende serogroep worden bepaald: Grippotyphosa (n=1), Sejroe-Hebdomadis-Mini (n=1), Australis (n=1), Bataviae (n=1), Panama (n=1), Tarassovi (n=1) en Javanica/Celledoni (n=1). Van de overige patiënten is geen (geschikt) materiaal naar het Expertisecentrum voor Leptospirose gestuurd en kon geen infecterende serogroep worden bepaald.
2.12.4 Leptospiren bij dieren
Er komt in Nederland bij verschillende diersoorten Leptospira spp. voor. De meest pathogene Leptospira voor mensen zijn Leptospira van de serogroep Icterohaemorrhagiae, die in ratten voorkomen en die de Ziekte van Weil kunnen veroorzaken. Van de serogroep Icterohaemorrhagiae worden zowel serovar Icterohaemorrhagiae en serovar Copenhageni gevonden in Nederland. Naast ratten vormen ook muizen een reservoir voor Leptospira spp., vooral van de serogroepen Grippotyphosa en Ballum. In het thema-hoofdstuk van de Staat van Zoönosen 2016 is meer informatie te vinden over leptospirose in knaagdieren.
In 2025 betrof het percentage positief geteste honden bij het Veterinair Microbiologisch Diagnostisch Centrum (VMDC) 14.5%. Dit wijkt niet significant (p>0.05) af van de jaren 2022-2024. Er is geen duidelijke trend zichtbaar in het percentage positief geteste honden in de tijdsperiode 2010-2025. Het vóórkomen van leptospirose bij honden lijkt daarmee stabiel. Het is belangrijk om hierbij in ogenschouw te namen dat het 1) gaat om kleine aantallen (positieve) honden, waardoor kleine verschillen in het aantal positieve dieren al relatief grote fluctuaties in de percentages kunnen geven, 2) dat niet bij iedere verdachte patiënt diagnostiek wordt ingezet door dierenartsen en 3) dat het VMDC niet het enige laboratorium is dat leptospirosediagnostiek uitvoert bij honden. Conclusies over de exacte prevalentie in de Nederlandse hondenpopulatie zijn dan ook lastig te trekken.
2.12.5 Leptospiren in de leefomgeving
In 2025 heeft er geen onderzoek plaatsgevonden naar leptospiren in de leefomgeving.
Literatuur:
- Maas, M., et al., Prevalence of Leptospira spp. and Seoul hantavirus in brown rats (Rattus norvegicus) in four regions in the Netherlands, 2011-2015. Infection Ecology & Epidemiology. 2018; 8(1):1490135
2.13 Listeriose
2.13.1 Hoofdpunten
- In 2025 werden 97 personen met listeriose gemeld (5,4 patiënten per miljoen inwoners). Het aantal meldingen is daarmee vergelijkbaar met het mediane aantal meldingen in de periode 2016-2024 (n=96).
- Zes volwassen patiënten (7%) overleden direct of indirect aan de gevolgen van listeriose.
- Het aantal en percentage zwangeren varieerde tussen 2016 en 2024 van één tot 12 zwangeren en 1-13% van alle meldingen per jaar. In 2025 werd listeriose bij in totaal acht zwangeren (8%) gemeld. De ziektelast in deze groep was daarbij hoog aangezien drie baby’s doodgeboren werden of kort na de geboorte overleden.
- Op basis van Whole Genome Sequencing (WGS) behoorden 46 van de 83 beschikbare humane isolaten uit 2025 tot een cluster. Er werden 26, zowel al bestaande als nieuwe, clusters geïdentificeerd met één tot zes isolaten uit 2025.
- Twee clusters, die met 4-5 isolaten groeiden, betroffen grotere clusters uit eerdere jaren, gerelateerd aan visproductielocaties. Daarnaast was er één patiënt die onderdeel was van een Franse/internationale uitbraak.
2.13.2 Achtergrond
Listeria monocytogenes is een ubiquitair voorkomende Gram-positieve staafvormige bacterie die onder andere voorkomt in bodem, water, feces en op vegetatie. Veel dieren dragen L. monocytogenes in hun darmen bij zich en scheiden die uit via de feces. De bacterie kan overleven en zelfs groeien onder ongunstige omstandigheden, evenals goed overleven op een vaste ondergrond in biofilms. Biofilms kunnen ontstaan in productieomgevingen, vooral op plaatsen die moeilijk te reinigen en desinfecteren zijn. Vanuit deze productieomgeving kan voedsel weer besmet raken, wat vooral een risico vormt als het product daarna niet meer (voldoende) verhit wordt.
De meeste infecties met L. monocytogenes verlopen asymptomatisch of met een mild ziektebeeld met griepachtige verschijnselen. Bij personen met een verstoorde afweer verloopt de infectie vaak ernstiger. Er kan dan een systemische infectie ontstaan met bacteriëmie, meningitis of meningo-encefalitis, evenals peritonitis, bot- en gewrichtsinfecties, peri- of endocarditis en sepsis. Bij zwangeren kan de infectie leiden tot intra-uteriene vruchtdood en vroeggeboorte, waarbij de vrouwen zelf geen ziekteverschijnselen hoeven te vertonen.
In Nederland bestaat er sinds 2005 een laboratoriumsurveillance voor L. monocytogenes en een meldingsplicht sinds december 2008. Sinds 2017 wordt Whole Genome Sequencing (WGS) toegepast als standaard typeringsmethode. Daarnaast worden door de (Nederlandse Voedsel- en Warenautoriteit) jaarlijks diverse risicovolle voedingsmiddelen bemonsterd en door WFSR op besmetting met L. monocytogenes onderzocht. Ook deze isolaten worden getypeerd middels WGS. De WGS-data van humane patiënten en van voedingsmiddelen worden gezamenlijk geanalyseerd ten behoeve van clusterdetectie en bronopsporing.
2.13.3 Listeriose bij mensen
In 2025 werden 97 patiënten met listeriose gerapporteerd (zie Figuur 2.13.1). Hiervan werden 92 patiënten via Osiris gemeld (van 78 patiënten is ook een isolaat naar het Nederlands Referentie Laboratorium voor Bacteriële Meningitis (NRLBM) gestuurd) en van vijf patiënten is alleen een isolaat ingestuurd. De incidentie van listeriose kwam daarmee op 5,4 patiënten per miljoen inwoners. De incidentie, berekend over 2021-2025, stijgt met de leeftijd, met uitzondering van een lichte piek voor vrouwen in de leeftijd 20-39 jaar, die voornamelijk zwangere vrouwen betreft (zie Figuur 2.13.2). Boven de 65 jaar is de incidentie duidelijk hoger onder mannen dan onder vrouwen. De mediane leeftijd van alle patiënten in 2025 was 74 jaar (range 19-96 jaar) en 48 procent van de patiënten was man. Acht patiënten (8%) waren zwanger tijdens de Listeria-infectie; vier baby’s zijn levend geboren. Drie baby’s werden doodgeboren of overleden kort na de geboorte. Eén zwangere was nog zwanger na het aflopen van de infectie. Van de 92 volwassen patiënten waarvoor dit bekend was, werden er 90 opgenomen in het ziekenhuis (98%). Van 89 (volwassen) patiënten van wie het beloop van de infectie bekend was, zijn er 6 overleden (7%) met een mediane leeftijd van 83,5 jaar (range 74-93 jaar). Het sterftepercentage varieert sterk door de jaren heen en was het hoogst in 2015 (22%) en het laagst in 2011 (5%). Binnen het tijdvak 2016-2025 stierf gemiddeld 11 procent van de gemelde volwassen patiënten.
De meest voorkomende ziektebeelden, zoals gemeld tijdens de diagnose, waren meningitis, maag-darminfectie en sepsis. Meningitis werd het meest gemeld (22/92 patiënten; 24%), gevolgd door maag-darminfectie (21/92 patiënten; 23%) en sepsis (18/92 patiënten; 20%). Longontsteking werd in de afgelopen paar jaren steeds minder vaak gemeld: tussen 7% en 12% in 2016-2022, sinds 2023 is dit 3-5% (2025: 5/92; 5%). Encefalitis werd in 2025 driemaal gemeld en endocarditis eenmaal. Er kunnen meerdere diagnoses per patiënt gemeld worden.
Mensen met onderliggend lijden en/of medicijngebruik hebben een verhoogd risico op listeriose. In 2025 hadden negen patiënten (10%) geen onderliggend lijden en gebruikten zij geen immunosuppressiva of maagzuurremmers. Opvallend daarbij was dat twee van deze negen patiënten jongvolwassenen waren, de overigen waren 65-plussers. Maagzuurremmers werden door 55 procent van de listeriose-patiënten gebruikt en 37 procent slikte immunosuppressiva. De meest genoemde onderliggende ziekten in 2025 waren kanker (25%), hartziekten (23%) en diabetes (15%).
Van 83 patiënten werd het isolaat door het NRLBM (Nederlands Referentie Laboratorium voor Bacteriële Meningitis) geserotypeerd, waarbij de methode van serotyperen in de loop van 2025 is veranderd. De meeste isolaten waren afkomstig uit bloed (81%), liquor (12%), of zowel bloed als liquor (4%). De overige isolaten waren afkomstig uit pericardvocht, oog en pus. Het serotype was beschikbaar voor 77 isolaten. Serotype 4b werd het vaakst gezien (38/77; 49%. Geen verschil in interpretatie tussen de eerdere serotyperingsmethode en de blot-uitslag type 4b). Blot type 1/2 omvat de serotypes 1/2a, 1/2b en 1/2c en werd gezien bij 28 isolaten, plus in de eerste deel van het jaar ook nog viermaal 1/2a en driemaal 1/2b. Tot slot werd tweemaal blot type 1/2* geïdentificeerd, welke naast serotypes 1/2a, 1/2b en 1/2c ook nog serotype 3a of 3b kan zijn.
In totaal werden er, op basis van WGS, 26 clusters geïdentificeerd die 46 van de 83 humane isolaten uit 2025 bevatten. Het aantal humane isolaten uit 2025 per cluster was
één (18 clusters), twee (3 clusters), drie of vier (3 clusters) en vijf of zes (2 clusters). Van de 26 clusters bevatten 13 clusters minimaal een niet-humaan isolaat. Noemenswaardige clusters waren:
- Een Nederlandse patiënt die onderdeel was van een Franse/internationale uitbraak veroorzaakt door kaas geproduceerd in Frankrijk.
- Twee patiënten die ten tijde van de besmetting in het ziekenhuis lagen en met een paar dagen verschil van elkaar ziek werden. Het betrof hierbij hetzelfde ziekenhuis, maar twee verschillende locaties en afdelingen.
- Twee clusters die gestart zijn in voorgaande jaren, waarbij de besmetting gerelateerd is aan locaties waar vis verwerkt wordt, groeiden in 2025 met 4 of 5 humane isolaten.
- Eén cluster met zes isolaten in 2025 en één in 2022, zonder een match met een niet-humaan isolaat. De isolaten waren niet geografisch of in de tijd geclusterd. De consumptiegegevens van de patiënten uit Osiris leidden daarbij ook niet tot een bron.
Figuur 2.13.1 Aantal Listeria-patiënten bij de mens, totaal en zwangerschap gerelateerd, 2016-2025
Figuur 2.13.2 Incidentie per 100.000 inwoners, per leeftijdsgroep en geslacht, 2021-2025
2.13.4 Listeria in voedsel
In Europa is het terugdringen van het aantal listeriose-gevallen een speerpunt. Aangezien de mens voornamelijk door levensmiddelen aan Listeria wordt blootgesteld, zijn er op Europees niveau wettelijke criteria voor L. monocytogenes opgesteld voor kant-en-klare levensmiddelen (inclusief zuigelingenvoeding en voeding voor medisch gebruik). Deze criteria zijn vastgelegd in Verordening (EG) nr. 2073/20051. Algemeen geldt een criterium van ≤ 100 kolonie vormende eenheden (kve)/gram gedurende de gehele houdbaarheid van het product. Wanneer het bedrijf geen of een onvoldoende goede houdbaarheidsstudie heeft uitgevoerd geldt een criterium van afwezigheid in 25 gram direct na productie. Voor zuigelingenvoeding en voeding voor medisch gebruik geldt altijd de eis van afwezigheid in 25 gram. De (Nederlandse Voedsel- en Warenautoriteit) doet jaarlijks onderzoek naar het vóórkomen van L. monocytogenes in levensmiddelen, zowel koelverse, kant-en-klare producten -zoals gerookte vis, maaltijdsalades en rauw te consumeren vleesbereidingen, bijvoorbeeld filet américain en ossenworst- als ook rauwe producten waar, na een verhitting bij bereiding het gevaar van Listeria deels kan zijn weggenomen.
In 2025 onderzocht WFSR in opdracht van de NVWA in 39 projecten de aanwezigheid van L. monocytogenes op kwalitatieve wijze (aan- of afwezigheid) en in 24 projecten op kwantitatieve wijze (telling vanaf 10 kve/g). In 19 projecten zijn beide methodes op dezelfde monsters uitgevoerd. Binnen de projecten werden monsters genomen bij verschillende schakels in de voedselketen, detailhandel, productiebedrijven en uit importstromen. Naast kant en klare producten, waarvoor wettelijke criteria gelden, worden ook rauwe of nog te verhitten producten en omgevingsmonsters onderzocht. Naast levensmiddelen werd in twee van de projecten de aanwezigheid van L. monocytogenes onderzocht op veegdoekjes van de productie-omgeving.
De kwantitatieve methode leverde in totaal maar twee positieve monsters (meer dan 100 kve/g) op. Het betrof daarbij twee uit 686 monsters verhitte (gerookte) vis (0,3%). Veruit de meeste positieve monsters werden verkregen bij toepassing van de kwalitatieve detectie methode (aan-/afwezigheid in 25 gram). Een hoge prevalentie werd gezien voor projecten waar per product-batch in totaal vijf monsters werden onderzocht (zie Tabel 2.13.1), zoals zes positieve batches van de 21 onderzochte batches exotisch importvlees (28,6%). Verder werd een hoge prevalentie van L. monocytogenes gezien bij monsters van vleesprojecten, zoals vlees van niet-alledaagse diersoorten in de groothandel (waaronder eend en hert; 26,5%, 9/34 positieve monsters) en ready-to-eat vlees uit de detailhandel (23,3%, 35/150).
Bij het project verhitte visproducten werd een prevalentie gevonden van 10,4% (69/665 monsters; Tabel 2.13.1). In het project waar sushi is onderzocht was 11,8% van de monsters positief (8/68 monsters). Bij de overige visproducten werden lagere percentages gevonden. Ook bij projecten op schaal- en schelpdieren (anders dan import), droge worst, vers varkensvlees, vers kalfsvlees, tahin en hummus, spreads of saus, paddenstoelen, alternatieve eiwit-producten en maaltijdproducten (zoals salades) werden (incidenteel) positieven gevonden (Tabel 2.13.1). Er werden geen positieven gevonden in projecten waarbij fruit, paté, tofu-tempé, en vleeswaren zijn onderzocht.
In een project waarin veegdoekjes uit de omgeving en van apparatuur bij bedrijven die vleeswaren snijden en verpakken, werden genomen, bleken 12 van de 27 bedrijven positief (44,4%). Hierbij zijn per bedrijf steeds vijf tot negen veegdoekjes getest op aanwezigheid van L. monocytogenes. Daarnaast is met veegdoekjes bemonsterd bij slagerijen (wederom van de omgeving en van apparatuur), in dit project zijn 20 van de 47 bedrijven positief getest (42,6%), waarbij één tot vier veegdoekjes per bedrijf zijn bemonsterd.
Uit deze analyses zijn in totaal 318 L. monocytogenes isolaten verkregen en geanalyseerd middels Whole Genome Sequencing. Serogenotypering op basis van WGS was mogelijk voor alle 318 isolaten. Deze typering heeft geresulteerd in 165 stammen met type 1/2a, 3a (51,8%), 39 stammen met type 1/2b, 3b, 7 (12,2%), 36 stammen met type 1/2c, 3c (11,3%), en 78 stammen met type 4b, 4d, 4e (24,5%). Hoewel de genoserotypering op basis van WGS minder specifiek is dan de klassieke serotypering die bij de humane isolaten wordt uitgevoerd, is wel zichtbaar dat waar 4b-stammen bij patiënten (49%) het meest gezien worden, dit bij voedselisolaten meer type 1,2a, 3a is. De clusteranalyse laat zien dat van deze voedselisolaten uit 2025 89 isolaten behoorden tot 49 (meerjaren) clusters.
Tabel 2.13.1 Aanwezigheid van L. monocytogenes in de voedselproducten en omgevingsmonsters, zoals binnen de kwalitatieve projecten door WFSR getest in 2025
| Naam project: | Detecties/monsters (%) |
|---|---|
| Import: Exotisch vleesa | 6/21 (29%) |
| Import: Roodvleesa | 5/22 (23%) |
| I/G: Kiemgroentena | 2/11 (18%) |
| I/G: Omgevingsmonsters-productielocatiesb | 12/27 (44%) |
| Retail: Omgevingsmonsters-slagerijenb | 20/47 (43%) |
| I/G: Niet alledaagse diersoorten | 9/34 (27%) |
| Retail: Gehaktvlees en vleesbereidingen RTE | 35/150 (23%) |
| I/G: Gehaktvlees en vleesbereidingen RTE | 15/74 (20%) |
| Retail: Niet alledaagse diersoorten retail | 6/38 (16%) |
| Retail: Vers vlees rund | 31/263 (12%) |
| Retail: Sushi afhaal thuisbezorg retail | 8/68 (12%) |
| Retail: Vis en schaal- en schelpdieren RTE | 1/9 (11%) |
| Retail: Vlees kleine herkauwers | 19/179 (11%) |
| Retail: Behandelde verhitte vis | 69/665 (10%) |
| Import: Kweek vis en schaal- en schelpdieren | 14/196 (7%) |
| I/G: Behandelde verhitte vis RTE | 4/93 (5%) |
| I/G: Vers vlees kalf | 6/179 (3%) |
| Retail: Vers vlees varken | 9/276 (3%) |
| Retail: Hitte behandelde schaal- en schelpdieren RTE THT | 1/42 (2%) |
| Retail: Spreads en saus | 1/46 (2%) |
| I/G: Hitte behandelde garnalen RTE | 2/99 (2%) |
| Retail: Droge worst Fuet | 1/51 (2%) |
| Retail: Levende mosselen | 1/62 (2%) |
| Import: wildvang vis en schaal-schelpdieren | 2/148 (1%) |
| I/G: RTE gekoelde producten maaltijden etc | 3/265 (1%) |
| Retail: Tahin en hummus | 1/94 (1%) |
| Retail: Hitte behandelde garnalen RTE THT | 1/93 (1%) |
| Retail: Paddenstoelen | 1/91 (1%) |
| Retail: Alternatieve eiwitten THT | 1/115 (1%) |
| Retail: Vleeswaren / Gedroogde rauwe ham / Paté | 0/142 (0%) |
| Retail: Vers fruit kant en klaar / Bevroren zacht fruit / Schil fruit en noten | 0/142 (0%) |
| I/G: Hitte behandelde schaal- en schelpdieren RTE / Levende oesters | 0/76 (0%) |
| I/G & retail: Tofu tempe | 0/41 (0%) |
Literatuur:
- Europese Unie. Verordening (EG) nr. 2073/2005 van de Commissie van 15 november 2005 inzake microbiologische criteria voor levensmiddelen
2.14 Orthohantavirus
2.14.1 Hoofdpunten
- In 2025 werden 38 patiënten met een orthohantavirusinfectie gemeld. Dit is hoger dan het gemiddelde aantal meldingen van 2020-2024 (gemiddeld 22), maar het aantal patiënten fluctueert sterk per jaar (de spreiding in 2020-2024 was 11-39).
- 25 patiënten hadden een infectie met het puumalavirus (PUUV). Bij de andere 13 patiënten was het type orthohantavirus onbekend.
2.14.2 Wat zijn orthohantavirussen?
Orthohantavirussen zijn virussen die circuleren in specifieke knaagdier- en insectivoorgastheren1. Eerder werden deze virussen hantavirussen genoemd.
In Nederland is de circulatie van drie typen orthohantavirussen aangetoond in wilde knaagdieren:
- puumalavirus (PUUV) in rosse woelmuizen (Myodes glareolus)
- tulavirus (TULV) in veldmuizen (Microtus arvalis)
- seoulvirus (SEOV) in bruine ratten (Rattus norvegicus) 2
In gehouden ratten, zowel voederratten als tamme ratten, is SEOV ook aangetoond3. Daarnaast zijn virussen van de Hantaviridae-familie gevonden in mollen: het novavirus en het brugesvirus4.
In andere Europese landen circuleren ook nog andere orthohantavirussen, zoals in onder meer Oost-Duitsland het dobrava-belgradevirus (DOBV, vier verschillende genotypen met allemaal hun eigen specifieke gastheer).
2.14.2.1 Transmissieroute orthohantavirussen
Geïnfecteerde gastheren scheiden orthohantavirus uit via feces, urine en speeksel. Uitscheiding van PUUV is mogelijk tot minimaal acht maanden na besmetting5.
Knaagdieren en insectivoren raken besmet met orthohantavirussen door elkaar te bijten of te krabben, of door in aanraking te komen met elkaars besmette uitwerpselen. Ze zijn dragers van het virus en worden zelf niet ziek van een besmetting.
Mensen kunnen besmet raken door het inademen van virusdeeltjes in opdwarrelend stof met excreta van besmette dieren of via direct contact met uitwerpselen of speeksel van besmette dieren, zoals tamme ratten.
2.14.2.2 Infectie bij de mens
De meerderheid van de humane gevallen in Nederland en Europa wordt veroorzaakt door PUUV.6 Sinds 2016 zijn in Nederland ook enkele patiënten gediagnosticeerd met SEOV, gerelateerd aan voederratten en tamme ratten3,7.
De meeste mensen worden niet ziek van een orthohantavirusinfectie. Als ze wel ziek worden, kunnen orthohantavirussen twee verschillende ziektebeelden veroorzaken, afhankelijk van het virus dat iemand heeft:
- hemorragische koorts met renaal syndroom (HKRS) door orthohantavirussen in Europa en Azië
- hantavirus (cardio)pulmonaal syndroom (HPS) door orthohantavirussen in Noord- en Zuid-Amerika
Het belangrijkste klinische syndroom in Nederland is nefropathia epidemica (NE), een milde vorm van HKRS, veroorzaakt door PUUV. Een belangrijk punt bij de diagnostiek voor PUUV en andere milde orthohantavirusinfecties is dat de viremische fase erg kort is en de titer van het virus vaak laag. Hierdoor kan het virus of zijn RNA gemist worden, en is men aangewezen op serologie.
Het (Rijksinstituut voor Volksgezondheid en Milieu), LabMicTA en Erasmus MC voeren orthohantavirusdiagnostiek uit. Orthohantavirusinfecties zijn meldingsplichtig in Nederland sinds december 2008.
2.14.3 Orthohantavirusinfecties bij mensen in 2025
In 2025 werden er 38 patiënten met orthohantavirusinfecties gemeld. Dit is hoger dan het gemiddelde aantal meldingen van 2020-2024 (gemiddeld 22), maar het aantal patiënten fluctueert sterk per jaar (de spreiding in 2020-2024 was 11-39, Figuur 2.14.1).
In 2025 hadden 25 patiënten een infectie met PUUV. Bij de andere 13 patiënten was het type infecterende orthohantavirus onbekend. Zoals gebruikelijk kwamen de meeste meldingen uit het zuidoosten en oosten van het land, met de hoogste aantallen in (Gemeentelijke gezondheidsdiensten) Regio Twente (n=14), GGD Brabant-Zuidoost (n=8) en GGD Noord- en Oost-Gelderland (n=7).
De patiënten betroffen 25 mannen en 12 vrouwen, wat een gebruikelijke man-vrouwverdeling is voor orthohantavirusinfecties. Van één patiënt was het geslacht onbekend. De mediane leeftijd was 49 jaar (spreiding: 19-71). 32 patiënten (84%) waren opgenomen in het ziekenhuis. Bijna alle patiënten hadden de infectie opgelopen in Nederland (n=37). Eén patiënt had de infectie opgelopen in België. De meldingen waren verspreid over het jaar, met iets hogere aantallen in mei tot en met juli en in oktober.
De meest genoemde bron van besmetting was het schoonvegen of betreden van een ruimte die lange tijd leegstond, zoals een schuur, zolder of stal, of men had op een andere manier direct contact gehad met ratten- en/of muizenkeutels.
Figuur 2.14.1 Aantal orthohantavirus-infecties bij mensen per jaar (bron: RIVM)
2.14.4 Orthohantavirus bij dieren in 2025
Het (Rijksinstituut voor Volksgezondheid en Milieu) heeft in 2025 geen dieren getest op orthohantavirus. Ook zijn er in 2025 geen verdachte of geteste dieren voor orthohantavirus gemeld bij de (Nederlandse Voedsel- en Warenautoriteit) en heeft er geen bronopsporing plaatsgevonden.
Literatuur:
- Maes P. et al., Taxonomy of the family Arenaviridae and the order Bunyavirales: update 2018. Archives of Virology. 2018; 163(8):2295-2310
- Verner-Carlsson J., et al., First evidence of Seoul hantavirus in the wild rat population in the Netherlands. Infection, Ecology & Epidemiology. 2015; 5:27215.
- Cuperus, T., et al., Seoul virus in pet and feeder rats in The Netherlands. Viruses. 2021; 13(3):443
- Cuperus, T., et al., Occurrence of Rickettsia spp., Hantaviridae, Bartonella spp. and Leptospira spp. in European Moles (Talpa europaea) from the Netherlands. Microorganisms. 2022; 11(1):41
- Voutilainen L., et al., Life-long shedding of Puumala hantavirus in wild bank voles (Myodes glareolus). J Gen Virol. 2015;96(Pt 6):1238–47.
- European Centre for Disease Prevention and Control. Hantavirus infection: Annual epidemiological report for 2020. Stockholm: (European Centre for Disease Prevention and Control); 2023.
- Swanink, C., et al., Autochthonous Human Case of Seoul Virus Infection, the Netherlands. Emerging Infectious Diseases. 2018; 24(12): 2158-2163
2.15 Psittacose en andere Chlamydia-infecties van dierlijke oorsprong
2.15.1 Hoofdpunten
- Er waren in 2025 in totaal 45 humane meldingen, in 43 gevallen betrof dit specifiek psittacose en in twee gevallen andere Chlamydia-infecties van dierlijke oorsprong. Dit aantal ligt aanzienlijk lager dan de vier voorgaande jaren.
- De thuissituatie was net als in voorgaande jaren de meest gerapporteerde mogelijke locatie van besmetting (67%). De vaakst gerapporteerde diersoort als besmettingsbron betrof vogels (80%), specifiek duiven (27%), waarvan het merendeel gehouden duiven.
- In 2025 is een gezinscluster van twee patiënten met C. felis gemeld met als meest waarschijnlijke bron katten in het eigen huishouden. Beide patiënten vertoonden symptomen van conjunctivitis.
- In 2025 zijn acht veterinaire meldingen bij de (Nederlandse Voedsel- en Warenautoriteit) binnengekomen met betrekking tot psittacose. Dit aantal ligt aanzienlijk lager dan de vier voorgaande jaren. Toen varieerde het aantal meldingen tussen de 13 en 22 per jaar.
2.15.2 Achtergrond
Psittacose is een respiratoire infectie met een variabele presentatie, veroorzaakt door Chlamydia psittaci. De infectie kan symptoomloos verlopen, maar kan zich ook uiten als griepachtig ziektebeeld met koorts, hevige hoofdpijn, spierpijn, hoesten, rillerigheid en zweten. Ook kan het zich presenteren in ernstige vorm als pneumonie of als een septisch ziektebeeld met multi-orgaanfalen. Psittacose wordt ook wel ornithose, papegaaienziekte of aviaire chlamydiose genoemd en is humaan en veterinair meldingsplichtig (zie paragraaf 2.2). Het genus Chlamydia bestaat momenteel uit 14 species1-4. Tot 1 juli 2020 was alleen C. psittaci meldingsplichtig bij mensen. Met enige regelmaat werden bij patiënten echter ook andere Chlamydia spp. van dierlijke oorsprong gedetecteerd en bleek dat bronopsporing en bestrijding bij alle Chlamydia spp. van dierlijke oorsprong van belang is. Sinds 1 juli 2020 is de meldingsplicht bij mensen daarom uitgebreid naar alle Chlamydia spp. van dierlijke oorsprong. Bij dieren zijn Chlamydia spp. anders dan C. psittaci niet meldingsplichtig.
Leeswijzer: Subhoofdstuk 2.15.3 focust zich op de meldingen van psittacose en andere chlamydia-infecties van dierlijke oorsprong bij mensen en de resultaten van het brononderzoek dat naar aanleiding van deze meldingen gedaan werd. Subhoofdstuk 2.15.4 zich richt op meldingen vanuit dieren.
Leeswijzer: subhoofdstuk 2.15.3 focust zich op de meldingen van psittacose en andere Chlamydia-infecties van dierlijke oorsprong bij mensen en de resultaten van het brononderzoek dat naar aanleiding van deze meldingen gedaan werd. Subhoofdstuk 2.15.4 zich richt op meldingen vanuit dieren.
2.15.3 Meldingen humaan
2.15.3.1 Epidemiologie
Het aantal humane meldingen van psittacose en andere Chlamydia-infecties van dierlijke oorsprong in 2025 bedroeg 45 en ligt daarmee aanzienlijk lager dan de voorgaande vier jaar (Figuur 2.15.1). De reden van deze afname is niet bekend, waarschijnlijk valt dit binnen de natuurlijke variatie. Het betrof 43 maal een infectie met C. psittaci en tweemaal een infectie met C. felis. De mediane leeftijd van de patiënten was 65 jaar, wat vergelijkbaar is met voorgaande jaren. Evenals in voorgaande jaren werden de meeste gemelde patiënten opgenomen in het ziekenhuis (89%). Dit hangt samen met het feit dat doorgaans alleen bij ernstig zieke patiënten gestreefd wordt naar een etiologische diagnose (met laboratoriumdiagnostiek) en/of wanneer de empirische behandeling niet aanslaat. De gemelde patiënten zijn wat betreft ernst dus een selectieve groep (oftewel het ‘topje van de ijsberg’). Er waren drie overlijdens gedurende 2025, dit komt ook overeen met het beeld van de voorgaande jaren.
In 2025 was er sprake van een gezinscluster C. felis, dit staat verder beschreven in subhoofdstuk 2.15.5. Verder waren er geen opvallende clusters of verheffingen gedurende 2025.
Figuur 2.15.1 Aantal meldingen van psittacose en andere Chlamydia infecties: humaan (Bron: Osiris) en veterinair (Bron: NVWA).
2.15.3.2 Diagnostiek
In het verleden werd psittacose voornamelijk gediagnostiseerd middels serologie. Tegenwoordig wordt bij het overgrote deel van de patiënten de diagnose gesteld met een polymerase chain reaction-test (PCR). In 2025 was dit bij 98% van de gemelde patiënten het geval (Tabel 2.15.1). Dit is gunstig, aangezien met PCR de diagnose sneller gesteld kan worden dan met behulp van serologische diagnostiek. Bij serologische diagnostiek is volgens de huidige meldingscriteria een meervoudige titerstijging vereist en is dus tweemaal bloedafname met een tussenpoos van enkele weken nodig. Snellere diagnostiek, zoals met PCR, is gunstig voor de patiënt, omdat de juiste antibioticumbehandeling daarmee mogelijk eerder ingezet kan worden. Ook kan het gebruik van PCR bronopsporing bevorderen qua snelheid en richting. Op het diagnostisch monstermateriaal van patiënten bij wie de diagnose gesteld is kan namelijk genotypering uitgevoerd worden, waarna vergelijking tussen mens en dier mogelijk wordt.
2.15.3.3 Genotypering
Om meer zicht te krijgen op de genotypen van C. psittaci die een rol spelen bij transmissie naar de mens, kan sinds eind augustus 2012 op diagnostisch materiaal van psittacosepatiënten genotypering gedaan worden in het microbiologisch laboratorium van het ZuyderlandMC (ZMC) in Sittard-Geleen/Heerlen. Sinds 1 juli 2022 is dit laboratorium in samenwerking met (Rijksinstituut voor Volksgezondheid en Milieu)/CIb officieel aangewezen als referentielaboratorium voor Chlamydia spp. van dierlijke oorsprong.
De genotyperingsmethode (ompA-genotypering op het ‘variabele domein IV’) kan minstens negen genotypen van C. psittaci onderscheiden (A tot en met F, E/B, M56 en WC) die een min of meer vogelsoortafhankelijk voorkomen hebben5. In 2025 ontving ZMC materiaal van 41 van de 44 met PCR gediagnosticeerde patiënten (93%, Tabel 2.15.2). Net als in de voorgaande jaren kwamen genotype A (geassocieerd met papegaaiachtigen en zangvogels) en genotype B (geassocieerd met duiven) het meest voor, namelijk in respectievelijk 24% en 54% van de gevallen. De dominantie van genotype A en B lijkt zich af te wisselen. In 2023 en 2024 kwam genotype A het vaakst voor, terwijl dat gedurende 2021 en 2022 genotype B betrof, net als in 2025.
Verder heeft de genotypering bij één patiënt C. psittaci genotype E/B aangetoond. Ook is bij twee patiënten een C. psittaci genotype vergelijkbaar met genotype E/B aangetoond (genotype Qld/H/PI; Figuur 2.15.2). Daarnaast kunnen nauw verwante Chlamydia-species via de typering herkend worden. Op die manier werd in 2025 bij twee patiënten C. felis stam gevonden.
Tabel 2.15.1 Demografische, klinische en diagnostische gegevens van in Osiris gemelde patiënten met psittacose en andere Chlamydia-infecties van dierlijke oorsprong in 2025a
| Jaar (aantal meldingen) b | Incidentie (per 100.000) | Mediane leeftijd in jaren (1e en 3e kwartiel) | Aantal mannen (%) b | Aantal besmet in het buitenland (%) b | Ziekenhuis- opname (%) b |
|---|---|---|---|---|---|
| 2025 (n=45) | 0,25 | 65 (53-73) | 31 (69) | 1 (2) | 40 (89) |
| 2024 (n=59) | 0,33 | 66 (57 - 76) | 39 66) | 5 (9) | 53 (90) |
| 2023 (n=75) | 0,42 | 67 (53 – 77) | 57 (77) | 6 (8) | 70 (93) |
| 2022 (n=61) | 0,35 | 67 (58 - 74) | 47 (76) | 3 (5) | 58 (95) |
| 2021 (n=56) | 0,32 | 66 (55 - 75) | 40 (71) | 1 (2) | 52 (93) |
| Jaar (aantal meldingen) b | Aantal overleden (%) b | Mediane diagnostische vertraging in dagen (1e en 3e kwartiel) c | Diagnostiek toegepast bij de gemelde patiënten: | ||
|---|---|---|---|---|---|
| PCR (%) b,d | Alleen serologisch (%)b | Geen b | |||
| 2025 (n=45) | 3 (7) | 8 (5-11) | 44 (98) | 1 (2) | 0 |
| 2024 (n=59) | 2 (3) | 9 (6 -11) | 59 (100) | 0 | 0 |
| 2023 (n=75) | 2 (3) | 8 (6 -11) | 74 (99) | 1 (1) | 0 |
| 2022 (n=61) | 3 (5) | 9 (7 -13) | 59 (97) | 2 (3) | 0 |
| 2021 (n=55) | 2 (4) | 9 (7 – 11) | 56 (100) | 0 | 0 |
Figuur 2.15.2 Eenvoudige grafische weergave van sequenties van C. psittaci (op basis van een deel van ompA Variabele domein 4 (131- 138 base paren; genotype afhankelijk)) en C. abortus vanuit de meldingen van 2024. Sequenties zijn weergegeven als het aantal nucleotiden verschil, gemaakt met MEGA 11.0. Aantallen gevonden isolaten tussen haakjes.
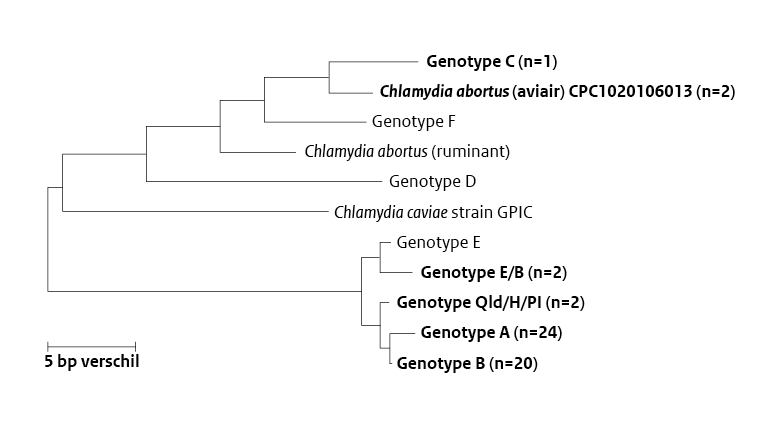
Tabel 2.15.2 Resultaten genotypering van patiënten met Chlamydia-infecties van dierlijke oorsprong in 2021-2025 (Bron: Zuyderland MC).
| n (%) | 2021 | 2022 | 2023 | 2024 | 2025 |
|---|---|---|---|---|---|
| Aantal patiënten die in aanmerking kwamen voor genotypering a | 56 | 59 | 74 | 59 | 44 |
| Gemelde patiënten van wie materiaal voor genotypering is ontvangen bij het Zuyderland MC | 47 (84) | 52 (88) | 69 (93) | 55 (93) | 41 (93) |
| Typeringsuitkomstenb: | |||||
| C. psittaci: | |||||
| Genotype A | 11 (23) | 13 (25) | 33 (48) | 24 (44) | 10 (24) |
| Genotype B | 21 (45) | 21 (40) | 18 (26) | 20 (36) | 22 (54) |
| Genotype C | 0 | 0 | 1 (1) | 1 (2) | 0 |
| Genotype E/B | 3 (6) | 1 (2) | 0 | 2 (4) | 1 (2) |
| Nieuw genotype verwant aan genotype A | 0 | 0 | 0 | 0 | 0 |
| Nieuw genotype verwant aan genotype E/B | 0 | 0 | 1 (1) | 0 | 2 (5) |
| Genotype Qld/H/Pic | 1 (2) | 3 (6) | 3 (4) | 2 (4) | |
| Andere Chlamydia van dierlijke oorsprong: | |||||
| C. caviae | 2 (4) | 0 | 1 (1) | 0 | 0 |
| C. felis | 2 (4) | 0 | 0 | 0 | 2 (5) |
| C. abortus (klassieke zoogdieren stam) | 0 | 0 | 0 | 0 | 0 |
| C. abortus, genotype CPC1020106013 (aviaire stam) | 2 (4) | 7 (13) | 5 (7) | 2 (4) | 0 |
| C. abortus, genotype KML-2021 (aviaire stam) | 1 (2) | 0 | 0 | 0 | 4 (10) |
| Negatief voor alle genotypes van C. psittaci en andere Chlamydia | 8 (17) | 3 (6) | 6 (9) | 4 (7) | 0 |
| Geen bepaling mogelijk | 1 (2) | 4 (8) | 1 (1) | 0 | 0 |
Tabel 2.15.3 Totaal aantal mogelijke bronnen van besmetting naar type locatie gerapporteerd bij humane meldingen van psittacose en andere Chlamydia-infecties van dierlijke oorsprong in 2021-2025a,b (Bron: Osiris).
| Jaar | 2021 | 2022 | 2023 | 2024 | 2025 |
|---|---|---|---|---|---|
| Meldingen (n, %) | Meldingen (n, %) | Meldingen (n, %) | Meldingen (n, %) | Meldingen (n, %) | |
| Eigen thuissituatie | 43 (56) | 36 (55) | 40 (43) | 36 (51) | 33 (54) |
| Thuissituatie van anderen (familie, vrienden, kennissen) | 12 (16) | 10 (15) | 11 (12) | 7 (10) | 8 (13) |
| Elders gehouden hobbydieren van patiënt of zijn naasten | 2 (3) | 1 (2) | 4 (4) | 1 (1) | 1 (2) |
| Dierenwinkel | 7 (9) | 2 (3) | 5 (5) | 3 (4) | 3 (5) |
| Dierenhospitaal/, -asiel, of opvang | 1 (1) | 3 (5) | 1 (1) | 0 | 0 |
| Kinderboerderij, dierentuin, vogeltuin | 1 (1) | 2 (3) | 5 (5) | 2 (3) | 1 (2) |
| Dierenshow-, of markt | 0 | 0 | 2 (2) | 3 (4) | 3 (5) |
| Openbare ruimte binnen | 0 | 1 (2) | 1 (1) | 0 | 1 (2) |
| Openbare ruimte buiten (park, bos, etc) | 9 (12) | 8 (12) | 14 (15) | 11 (16) | 6 (10) |
| Anders | 2 (3) | 2 (3) | 10 (11) | 7 (10) | 5 (8) |
| Totaal aantal mogelijke bronnen met waarbij een type locatie gerapporteerd is. | 77 (100) | 65 (100) | 93 (100) | 70 (100) | 61 (100) |
Tabel 2.15.4 Totaal aantal mogelijke bronnen van besmetting naar diersoort (wild of gehouden) gerapporteerd bij humane meldingen van psittacose in 2021-2024 (Bron: Osiris) a,b
| Jaar | 2021 | 2022 | 2023 | 2024 | 2025 |
|---|---|---|---|---|---|
| Meldingen (n, (%)) | Meldingen (n, (%)) | Meldingen (n, (%)) | Meldingen (n, (%)) | Meldingen (n, (%)) | |
| Vogels: | 87 (80) | 77 (73) | 95 (76) | 83 (77) | 78 (80) |
| duiven | 30 (28) | 28 (26) | 35 (28) | 21 (19) | 26 (27) |
| waarvan gehouden c | 20 (67) | 20 (71) | 15 (43) | 6 (29) | 16 (62) |
| papegaaiachtigen | 10 (9) | 15 (14) | 14 (11) | 16 (15) | 14 (14) |
| zangvogels | 13 (12) | 13 (12) | 13 (10) | 11 (10) | 9 (9) |
| waarvan gehouden c | 6 (46) | 8 (62) | 6 (46) | 7 (64) | 7 (78) |
| pluimvee | 12 (11) | 6 (6) | 6 (5) | 8 (7) | 9 (9) |
| anders | 9 (8) | 5 (5) | 17 (14) | 8 (7) | 7 (7) |
| vogelsoort onbekend | 13 (12) | 10 (9) | 10 (8) | 19 (18) | 13 (13) |
| Cavia's | 3 (3) | 3 (3) | 2 (2) | 1 (1) | 1 (1) |
| Geiten | 2 (2) | 2 (2) | 1 (1) | 0 | 0 |
| Hamsters | 1 (1) | 1 (1) | 1 (1) | 1 (1) | 1 (1) |
| Katten | 3 (3) | 8 (8) | 6 (5) | 1 (1) | 3 (3) |
| Schapen | 2 (2) | 2 (2) | 1 (1) | 1 (1) | 0 |
| Honden | 5 (5) | 2 (2) | 10 (8) | 6 (6) | 6 (6) |
| Konijnen | 4 (4) | 3 (3) | 2 (2) | 2 (2) | 2 (2) |
| Andere diersoort | 2 (2) | 8 (8) | 7 (6) | 13 (12) | 5 (6) |
| Totaal aantal mogelijke dierbronnen (met een bekende diersoort) | 109 (100) | 106 (100) | 125 (100) | 108 (100) | 98 (100) |
| Diersoort onbekend | 5 | 0 | 6 | 2 | 4 |
2.15.3.4 Besmettingsbronnen
Bronopsporing is gebaseerd op informatie uit vragenlijsten die worden afgenomen bij patiënten naar aanleiding van een melding. Bij 42 van de 45 (93%) meldingen werd door de (Gemeentelijke gezondheidsdiensten) minstens één mogelijke bron van besmetting naar type locatie gerapporteerd. Bij de drie meldingen waarbij geen mogelijke bron van besmetting naar type locatie gerapporteerd was, was dat in één geval omdat er geen bronnen waren in Nederland en in twee gevallen omdat de patiënt niet in contact is geweest met dieren, uitwerpselen van dieren of andere producten van dieren. Het totaal aantal mogelijke bronnen waarbij een type locatie gerapporteerd was, bedroeg 61 (Tabel 2.15.3). De thuissituatie was net als in voorgaande jaren de meest gerapporteerde mogelijke locatie van besmetting (67%). Ook openbare ruimte buiten werd regelmatig gerapporteerd als mogelijke locatie van besmetting (10%).
Bij 41 van de 45 (91%) meldingen werd door de GGD minstens één mogelijke bron van besmetting naar diersoort gerapporteerd. In totaal werden er 98 mogelijke dierbronnen (met een bekende diersoort) gerapporteerd (Tabel 2.15.4). Het ging hierbij vooral om vogels (80%). De meest gerapporteerde vogelsoort betrof duiven (27%), waarvan het grootste deel gehouden duiven betrof (62%). Bij 20% van de mogelijke bronnen ging het om andere diersoorten dan vogels, bijvoorbeeld: cavia’s, katten, honden en konijnen, waarbij opgemerkt moet worden dat hoewel deze door de GGD gerapporteerd zijn als een mogelijke bronnen, dit niet in alle gevallen realistische dierbronnen betreffen.
2.15.3.5 Bemonsteringsresultaten
In overleg tussen de (Nederlandse Voedsel- en Warenautoriteit) en de GGD wordt bekeken of er aanknopingspunten zijn voor bemonstering van mogelijke dierlijke bronlocaties en wordt besloten of bemonstering wel of niet geïndiceerd is. In totaal zijn er 13 unieke mogelijke bronlocaties bemonsterd door de NVWA voor 13 patiënten geïnfecteerd met C. psittaci. Bij negen bronlocaties is er minstens één dier geweest met een positieve uitslag voor C. psittaci. Bij acht van de positief geteste bronlocaties ging het om de eigen thuissituatie en één keer betrof het een andere locatie dan het eigen huishouden. De positief geteste dieren op de bronlocaties betroffen zeven keer duiven, eenmaal papegaaiachtigen en eenmaal zowel zangvogels als papegaaiachtigen. Bij acht positief geteste bronlocaties kwam het gevonden genotype bij de vogel overeen met dat van de patiënt. Hierbij ging het twee keer om genotype A en zes keer om genotype B. Bij de andere positief geteste bronlocatie was het niet mogelijk om na te gaan of er een genotypische match was, doordat er geen genotypering gedaan was bij de patiënt.
2.15.4 Meldingen vanuit dieren
Vanuit de Uitvoeringsverordening (EU) 2018/1882, die de regels voor diergezondheid uit de Europese Diergezondheidsverordening (Animal Health Law (EU) 2016/429) categoriseert, geldt een veterinaire meldingsplicht voor aviaire chlamydiose bij papegaaiachtigen (Psittaciformes). Nationaal is deze meldingsplicht voor aviaire chlamydiose (de officiële benaming van een psittacose-infectie bij vogels) uitgebreid tot een aangewezen dierziekte voor alle vogels (Aves) (Regeling diergezondheid, artikel 2.1. lid a). In Nederland is de meldingsplicht vastgelegd in artikel 2.12. van de Wet dieren.
(Wageningen Bioveterinary Research) is in Nederland aangeduid als het Nationaal Referentielaboratorium voor aviaire chlamydiose en voert de genotypering van de dieren uit die verdacht worden van Chlamydia psittaci via bronopsporing door de NVWA.
Veterinaire meldingen bij vogels komen bij de NVWA binnen via dierenartsenpraktijken, veterinaire laboratoria of vogelhouders. In 2025 kwamen er acht veterinaire meldingen bij de NVWA binnen met betrekking tot aviaire chlamydiose. Dit betrof één melding van verdachte zieke vogels en zeven meldingen van diagnostisch bevestigde vogels. Het aantal meldingen vanuit veterinaire casuïstiek ligt aanzienlijk lager dan in de vier voorgaande jaren. Toen varieerde het aantal veterinaire meldingen tussen de 13 en 22 per jaar.
Sinds februari 2024 wordt risico-gebaseerd beleid bij veterinaire meldingen toegepast door de NVWA. Bij laagrisico-veterinaire meldingen van vogels bij particulieren, zonder gerelateerde humane casus, geeft de NVWA mondeling en schriftelijk advies aan de houder en dierenarts over de te nemen maatregelen. Zij zijn verantwoordelijk voor de behandeling van de besmette vogels. De NVWA kan bij bijzonderheden nog wel locatiebezoek en/of (na)controles uitvoeren.
In 2025 zijn zeven van de acht veterinaire meldingen op deze wijze afgehandeld. De bron heeft bij deze casussen niet geleid tot humane ziekte en er is geen clustervorming waargenomen. Zowel de herkomst als de afhandeling van deze meldingen is schematisch weergegeven in Figuur 2.15.3.
Figuur 2.15.3 Schematische weergave van de veterinaire meldingen (Bron: NVWA).
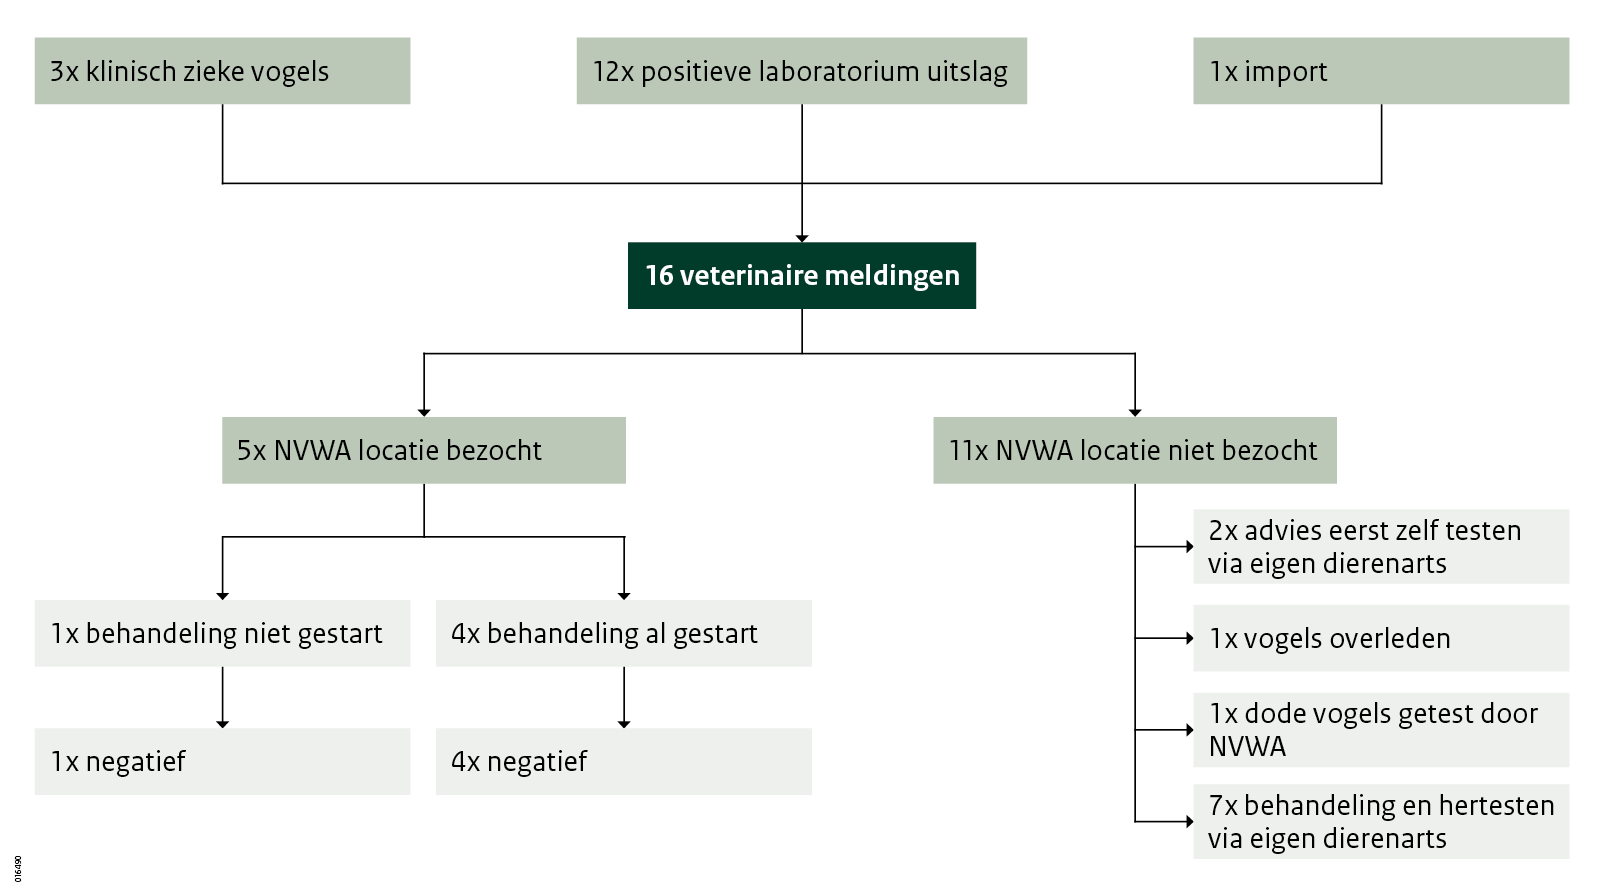
In 2025 werd 44% van de gemelde zieke vogels al behandeld met een antibiotica vóór het eerste bezoek van de NVWA. Vogels die erg ziek zijn of die positief getest zijn, mogen zonder voorafgaande bemonstering door de NVWA meteen door een dierenarts behandeld worden met een antibioticum. De behandelende dierenarts zal een nacontrole uitvoeren op verzoek van de NVWA om na te gaan of de behandeling effectief is geweest. Mocht de uitslag van de nacontrole positief zijn dan geldt opnieuw de meldingsplicht. In 2025 zijn er geen positieve nacontroles vanuit de dierenartsen gemeld.
De NVWA probeert voor een recent aangekochte positieve vogel ook de herkomstlocatie te achterhalen en deze locatie te bezoeken (dit heet ‘tracering’). Dit is niet altijd mogelijk door het ontbreken van een verplichte registratie en identificatie van de meeste soorten vogels. In 2025 heeft dit niet plaatsgevonden.
2.15.5 Andere mogelijk zoönotische Chlamydia-soorten
Chlamydia-soorten anders dan C. psittaci die zoönotisch kunnen zijn, zoals C. abortus, C. caviae en C. felis, zijn in Nederland pas sinds 1 juli 2020 meldingsplichtig bij mensen (zie paragraaf 2.2). Veterinair zijn deze Chlamydia-soorten niet aangewezen in Wet Dieren en daarom niet meldingsplichtig. Deze Chlamydia-soorten kunnen met de huidige diagnostische testen die gebruikt worden in de meeste medische microbiologische laboratoria (PCR) meestal wel worden opgepikt, maar niet onderscheiden worden. De aanvullende diagnostische testen die nodig zijn om hier onderscheid in te maken zijn slechts in een beperkt aantal laboratoria beschikbaar.
Voortdurende ontdekkingen van nieuwe soorten en vooruitgang in sequencing-technologieën geven de classificatie van Chlamydia voortdurend een nieuwe vorm, waardoor regelmatige updates nodig zijn. In de afgelopen jaren heeft de chlamydia-nomenclatuur verschillende herzieningen ondergaan vanwege het brede scala aan gastheren, de frequente ontdekking van nieuwe stammen en de herclassificatie van bestaande. Op dit moment bestaat het genus Chlamydia uit veertien soorten: C. abortus, C. psittaci, C. avium, C. gallinacea, C. buteonis, C. caviae, C. crocodili,6 C. felis, C. muridarum, C. pecorum, C. pneumoniae, C. poikilothermis, C. suis en C. trachomatis. Er staan nog vijf nieuwe soorten als kandidaat in de wachtrij (C. corallus, C. ibidis, C. sanzinia, C. serpentis, C. testudinis, ).7,8,9 Het valt ook niet uit te sluiten dat er in de nabije toekomst nog meer nieuwe soorten worden toegevoegd. Van veel nieuwe soorten is nog onbekend of ze zoönotisch kunnen zijn, omdat er simpelweg nog geen onderzoek naar is gedaan. In de Staat van Zoönosen 2021 Hoofdstuk 2.15.3 zijn verschillende soorten uitgebreid beschreven.
In 2025 is een gezinscluster van twee patiënten met C. felis gemeld. De patiënten hadden ongeveer een maand voor het krijgen van klachten een kitten gekocht met verschijnselen van niezen en later ook conjunctivitis. Ook een oudere kat in het huishouden ontwikkelde deze klachten. Behandeling van de katten leverde geen klinische verbetering op, waarna diagnostiek is ingezet via de eigen dierenarts en Chlamydia werd aangetoond bij beide katten. De humane patiënten ontwikkelden oogklachten (roodheid, wazig zien en toenemende pijn) en zijn vervolgens positief getest voor Chlamydia felis. Ze zijn niet opgenomen geweest in het ziekenhuis. Er zijn geen andere waarschijnlijke bronnen geïdentificeerd naast de eigen katten.
Literatuur:
- Chaiwattanarungruengpaisan S., et al. A new species of Chlamydia isolated from Siamese crocodiles (Crocodylus siamensis). PLoS One. 2021; 16(5): e0252081.
- Zaręba-Marchewka, K., et al., Chlamydiae, what’s new? J Vet Res. 2020; 64(4):461–467
- Borel N., Greub G., International Committee on Systematics of Prokaryotes (ICSP) Subcommittee on the taxonomy of Chlamydiae: Minutes of the closed meeting, 25 August 2022, ESCCAR Meeting Lausanne, Switzerland. Int J Syst Evol Microbiol. 2023;73:005712.
- Gooskens J., et al., Community-acquired pneumonia caused by avian Chlamydia abortus, the Netherlands, Emerging Infectious Diseases. 2025;31(3):630-633
- Heddema, E.R., et al. Typing of Chlamydia psittaci to monitor epidemiology of psittacosis and aid disease control in the Netherlands, 2008 to 2013. Eurosurveillance. 2015; 20(5):21026.
2.16 Q-koorts
2.16.1 Hoofdpunten
- In 2025 zijn er zeven patiënten met acute Q-koorts gemeld. Dit ligt in lijn met het aantal meldingen sinds 2020 en hiermee blijft het jaarlijkse aantal meldingen op een zeer laag niveau. Vijf van zeven patiënten waren man en de mediane leeftijd was 71 jaar.
2.16.2 Wat is Q-koorts?
Q-koorts wordt veroorzaakt door de bacterie Coxiella burnetii. Q-koorts is een van dier op mens overdraagbare aandoening (zoönose). Mensen kunnen besmet raken door het inademen van lucht waar de bacterie in zit. Herkauwers, zoals schapen en geiten, zijn de voornaamste bron voor humane infectie. Tijdens de lammerperiode scheiden geïnfecteerde moederdieren de bacteriën in grote hoeveelheid uit via vruchtwater en placenta. De dieren zelf vertonen meestal geen symptomen, hoewel vruchtbaarheidsproblemen en abortus kunnen optreden. Ook andere diersoorten kunnen C. burnetii uitscheiden en de bron zijn van humane infecties.
2.16.2.1 Morfologische varianten van C. burnetii
Er zijn twee morfologische varianten bekend van de bacterie C. burnetii: de kleincellige variant en de grootcellige variant. Deze varianten verschillen in metabole activiteit en mogelijkheid om in de omgeving te overleven. De kleincellige variant is een spore-achtige extracellulaire vorm die metabool inactief is. Dit is de vorm die zeer lang kan overleven in de omgeving, zoals in en rond stallen, weilanden, ruwe wol, huiden en kleding, en die via de lucht wordt verspreid. Infecties kunnen opgelopen worden na inhalatie van de kleincellige variant. De grootcellige variant daarentegen is de metabool actieve vorm waarin de bacterie zich vermenigvuldigt in cellen (vooral macrofagen en trofoblasten), nadat de infectie heeft plaatsgevonden.
2.16.2.2 Acute Q-koorts vs. chronische Q-koorts
Naast de twee morfologische varianten vertoont C. burnetii ook antigene variatie, op basis van verschillen van LPS (oppervlakte-lipopolysaccharide). Verschillende expressies van LPS vormen de basis van het onderscheid tussen fase I- en fase II-antigenen. Dit is belangrijk voor de serologische differentiatie tussen acute en chronische Q-koorts. Na infectie met C. burnetii verlopen de meeste gevallen asymptomatisch. Bij personen waarbij wel klinische klachten optreden, variëren de klachten tussen mild griepachtig tot een ziekte met ernstiger beloop. Bij een ernstiger verloop treden meestal pneumonie of hepatitis op, maar aangezien Q-koorts een gegeneraliseerde infectieziekte is met verspreiding via bloed, kunnen symptomen zich vanuit alle orgaansystemen voordoen. Een klein percentage (ongeveer 2%) van de geïnfecteerden ontwikkelt chronische Q-koorts, een ernstig ziektebeeld met voornamelijk cardiovasculaire pathologie. Ook kan infectie leiden tot het Q-koorts-vermoeidheidssyndroom.
2.16.3 Q-koortsmeldingen bij mensen in 2025
In 2025 werden zeven patiënten met acute Q-koorts gemeld in Osiris. Dit ligt in lijn met het aantal meldingen sinds 2020 en is net iets hoger dan de vier meldingen in 2024 (Figuur 2.16.1). Vijf van de zeven patiënten waren man, in lijn met voorgaande jaren. De mediane leeftijd was 71 jaar (Tabel 2.16.1). Hoewel dit is hoger dan vorig jaar, is dit niet uitzonderlijk gezien de leeftijdsverdeling in voorgaande jaren. Alle zeven de patiënten betroffen op zich staande meldingen: er waren geen verbanden tussen de meldingen te ontdekken en ze behoorden ook niet tot een geografisch cluster. Eén melding heeft de besmetting waarschijnlijk opgelopen in het buitenland. Brononderzoek door de (Gemeentelijke gezondheidsdiensten) in nauw contact met de (Nederlandse Voedsel- en Warenautoriteit) heeft geen concrete bronnen van de besmettingen opgeleverd.
Figuur 2.16.1 Aantal meldingen van acute Q-koorts per jaar, jaren 2016-2025 (Bron: Osiris)
Tabel 2.16.1 Demografische, klinische en diagnostische gegevens van in Osiris gemelde Q-koorts patiënten (Bron: Osiris)
| Jaar | Aantal meldingen a | Incidentie per 100.000 inwoners | Mediane leeftijd in jaren (1e en 3e kwartiel) | Aantal mannen (%) b | Aantal besmet in het buitenland (%) b | Ziekenhuisopname (%) b |
|---|---|---|---|---|---|---|
| 2025 | 7 | 0,04 | 71 (67-73) | 5 (71) | 1 (14) | 5 (71) |
| 2024 | 4 | 0,02 | 43 (32 – 52) | 3 (75) | 0 (0) | 2 (50) |
| 2023 | 4 | 0,02 | 62 (56 – 72) | 4 (100) | 1 (25) | 3 (75) |
| 2022 | 12 | 0,07 | 61 (53 – 72) | 9 (75) | 2 (17) | 10 (83) |
| 2021 | 6 | 0,03 | 58 (51 – 68) | 5 (83) | 0 (0) | 5 (83) |
| 2020 | 7 | 0,04 | 48 (37 – 56) | 6 (86) | 2 (29) | 5 (71) |
2.16.3.1 Sterfte door Q-koorts
In Nederland bestaat geen systematische surveillance van sterfgevallen ten gevolge van Q-koorts. In de Osiris-database worden alleen patiënten met acute Q-koorts gemeld. Als op het moment van melden bekend is dat het om een overleden patiënt gaat met acute Q-koorts, wordt dit gerapporteerd in Osiris. In 2025 is er één overlijden door Q-koorts gerapporteerd in Osiris.
2.16.3.2 Virologische weekstaten als aanvullende databron
In de Virologische Weekstaten worden ook positieve laboratoriumuitslagen voor C. burnetii gerapporteerd. De virologische weekstaten vormen het overzicht van wekelijks aangetoonde virusinfecties en intracellulaire bacteriën. Eenmaal per week melden 25 laboratoria het aantal keer dat een bepaalde infectie bij patiënten gevonden werd. Alle deelnemende laboratoria zijn aangesloten bij de Nederlandse Werkgroep voor Klinische Virologie van de Nederlandse Vereniging voor Medische Microbiologie (NVMM).De Virologische Weekstaten kunnen beschouwd worden als aanvullende databron voor de surveillance van Q-koorts die geschikt is voor het monitoren van trends in de tijd. Vanwege de verschillende casusdefinities in beide surveillancebronnen, kunnen geen relevante vergelijkingen gemaakt worden tussen het jaarlijks aantal cases in de meldingen en die in de virologische weekstaten. De Osiris-meldingen betreffen namelijk alleen acute Q-koortspatiënten, waarbij sprake is van koorts, pneumonie of hepatitis in combinatie met een positieve laboratoriumuitslag.
2.16.3.3 Q-koorts in de Virologische Weekstaten
De virologische weekstaten daarentegen bevatten ook positieve laboratoriumresultaten van patiënten die mogelijk in het verleden infecties hebben doorgemaakt en die bijvoorbeeld getest werden om chronische Q-koorts uit te sluiten. Daarbij zijn dan wel aanwijzingen voor eerder doorgemaakte acute Q-koorts infectie gevonden, maar geen passend klinisch beeld, waardoor de bevinding niet in Osiris gemeld is c.q. hoeft te worden. In 2025 werden 49 personen met een positieve laboratoriumuitslag voor C. burnetii in de virologische weekstaten gerapporteerd. Dit is het hoogste aantal van de afgelopen vijf jaren (resp. 35, 33, 37 en 29 personen in 2021-2024), maar aangezien verdere gegevens over herkomst, type en indicatie van de diagnostiek en achtergrondgegevens ontbreken in de virologische weekstaten, is de interpretatie hiervan lastig.
2.16.4 Q-koorts bij dieren in 2025
Alle schapen en geiten van door de wet aangewezen melkschapen- en melkgeitenbedrijven met meer dan vijftig dieren, alle bedrijven die voldoen aan de definitie van bedrijven met publieksfunctie en schapen en geiten die naar keuringen en/of shows gaan, moeten (elk jaar) verplicht worden gevaccineerd tegen Q-koorts. Volgens de Wet Dieren zijn onderzoeksinstellingen, dierenhouders (ook hobbyhouders) en dierenartsen verplicht verdenkingen van Q-koorts te melden bij de (Nederlandse Voedsel- en Warenautoriteit). Een afwijkend aantal abortussen (verwerpers) bij schapen en geiten is, volgens de Wet Dieren, het geldende meldingscriterium (zie paragraaf 2.2). In 2025 heeft de NVWA geen melding ontvangen van een toegenomen aantal abortussen bij kleine herkauwers.
2.16.4.1 Tankmelkmonitoringsonderzoek voor C. burnetii in 2025
Alle bedrijven met meer dan vijftig melkschapen en/of melkgeiten zijn verplicht mee te doen aan het tankmelkmonitoringsonderzoek dat uitgevoerd wordt door Royal (Gezondheidsdienst voor Dieren).
Als in het tankmelk onderzoek een PCR-uitslag met waarde boven de cutoff wordt gemeld aan de NVWA dan wordt dit monster ter confirmatie door gestuurd naar (Wageningen Bioveterinary Research). Na een positieve confirmatie worden er door Royal GD individuele dieren bemonsterd om daarmee uitscheidende dieren van het bedrijf te kunnen verwijderen. Als dat is gebeurd neemt de NVWA een officieel monster om het bedrijf eventueel weer vrij te verklaren. Wanneer de uitslag bij WBVR geconfirmeerd wordt gaat de NVWA een ambtelijk monster nemen. Dit monster wordt opnieuw bij WBVR onderzocht.
In 2025 is er vanuit Royal GD eenmaal een melding bij de NVWA binnen gekomen van een niet-negatieve uitslag van een tankmelk bemonstering van een melkgeitenbedrijf. Confirmatie bij WBVR van dit monster gaf een positieve PCR-uitslag. Door vervolgonderzoeken op het bedrijf door Royal GD en door officiële monsternames door de NVWA kon een niet-negatieve uitslag niet herhaald worden. Uit voorzorg is het bedrijf toch drie maanden geblokkeerd voor de aan- en afvoer van levende dieren en is de frequentie van de tankmelk bemonstering verdubbeld gedurende deze drie maanden; deze bemonsteringen gaven ook steeds negatieve uitslagen.
2.16.4.2 Brononderzoek bij Q-koorts in 2025
Wanneer bij een humane patiënt met Q-koorts een mogelijke dierlijke bron kan worden aangewezen, verzoekt de (Gemeentelijke gezondheidsdiensten) de NVWA om een brononderzoek uit te voeren. De NVWA onderneemt actie wanneer er tenminste twee patiënten zijn die aan een bepaalde locatie te linken zijn of wanneer er niet voldaan is aan de vaccinatieplicht. In 2025 heeft de GGD vijf meldingen van humane patiënten gedaan bij de NVWA, allen betroffen geïsoleerde gevallen waar geen bron opsporing gedaan hoefde te worden.
In het voorjaar van 2025 aborteerden vier bosrendieren door een infectie met Coxiella burnetii in een dierentuin. Nader onderzoek toonde aan dat het niet ging om de Nederlandse uitbraakstam maar een stam die eerder bij runderen in Oost-Europa is gevonden. Een uitgebreide beschrijving van deze casus is te lezen in hoofdstuk 3: Uitgelicht.
2.17 Rabiës
2.17.1 Hoofdpunten
- In 2025 zijn tien huisdieren en vijftien wilde, niet-vliegende zoogdieren onderzocht op rabiës. Bij geen van de dieren werd het klassiek rabiësvirus (RABV) aangetoond.
- In 2025 zijn twintig vleermuizen onderzocht op rabiës nadat bij de (Nederlandse Voedsel- en Warenautoriteit) melding was gemaakt van direct humaan contact. Bij drie van de twintig vleermuizen werd European Bat Lyssavirus (EBLV-1) aangetoond. Daarnaast ontving (Wageningen Bioveterinary Research) vleermuizen voor onderzoek die geen direct contact hadden met mensen. Bij vier van de 94 geteste vleermuizen werd EBLV-1 aangetoond. Alle positief geteste vleermuizen (zeven in totaal) waren van de soort Eptesicus serotinus, de laatvlieger.
- In 2025 zijn geen gevallen van rabiës bij mensen gemeld in Nederland. Het laatste humane sterfgeval dateert van 2014. Toen overleed een patiënt aan rabiës na een beet van een zwerfhond in het buitenland.
2.17.2 Wat is rabiës?
Rabiës, ook wel hondsdolheid genoemd, is een infectieziekte die wordt veroorzaakt door een lyssavirus. Het virus kan van dieren op mensen en andere dieren worden overgedragen. Deze overdracht vindt plaats via infectieus speeksel, meestal door een beet of krab. Daarnaast kan het virus worden overgedragen via speekselcontact op beschadigde huid of op slijmvliezen.
Het rabiësvirus veroorzaakt encefalomyelitis (ontsteking van de hersenen en van het ruggenmerg)
en tast de werking van het zenuwstelsel aan. Zodra klinische symptomen verschijnen eindigt de ziekte vrijwel altijd met de dood.
Rabiës t.g.v. klassiek rabiësvirus (RABV) veroorzaakt wereldwijd ongeveer 59.000 humane sterfgevallen per jaar, voornamelijk in Azië en Afrika.1 Veertig procent van de slachtoffers is jonger dan 15 jaar. Het merendeel van de besmettingen bij de mens ontstaat na een hondenbeet.
Vaccinatie voor blootstelling in combinatie met een snelle toediening van post-expositieprofylaxe (PEP) direct na blootstelling kan hondsdolheid bij mensen voorkomen.
2.17.2.1 Verschillende typen lyssavirus
Het rabiësvirus behoort tot de groep lyssavirussen, waarvan momenteel negentien verschillende typen door het International Committee on the Taxonomy of Viruses (ICTV) zijn erkend. Hieronder vallen onder andere:
- Klassiek rabiësvirus (RABV) - lyssavirus-rabiës: Dit virus komt wereldwijd voor bij honden en andere reservoirdieren en komt daarnaast op de Amerikaanse continenten en in het Caribisch gebied ook voor bij vleermuizen.
- European Bat Lyssavirus type 1 (EBLV-1) - lyssavirus hamburg en European Bat Lyssavirus type 2 (EBLV-2) - lyssavirus helsinki: Deze virussen komen onder andere in Nederland voor bij vleermuizen.2,3
Naar verwachting hebben ook de meeste andere lyssavirussen één of meerdere vleermuissoorten als gastheer. Alle lyssavirussen zijn zoönotisch (overdraagbaar van dier op mens) en potentieel dodelijk.
2.17.2.2 Rabiës bij mensen in Nederland
In Nederland komt rabiës bij mensen bijna nooit voor. In de afgelopen decennia zijn slechts acht patiënten met een rabiësinfectie beschreven4:
- In 1962 was er een uitbraak met vier slachtoffers na de illegale import van een geïnfecteerde hond.
- In 1996, 2013 en 2014 overleden in Nederland patiënten aan de gevolgen van een hondenbeet in het buitenland. In alle gevallen hadden de slachtoffers ter plaatse geen of geen volledige post-expositieprofylaxe (PEP) ontvangen
- In 2007 overleed een Nederlandse patiënt na in het buitenland op de neus te zijn gekrast door een vleermuis. Het betrof een infectie met het Duvenhage-virus. De patiënt had geen PEP ontvangen.
2.17.2.3 Rabiës bij dieren in Nederland
Nederland is officieel vrij van klassieke rabiës. De ziekte is uitgeroeid bij zowel wilde dieren als gezelschapsdieren. Klassieke rabiës kan echter opnieuw in Nederland geïntroduceerd worden, bijvoorbeeld via de illegale import van een geïnfecteerd huisdier, wanneer snelle opsporing van het dier en passende maatregelen uitblijven. Een dierenarts is wettelijk verplicht om een klinische verdenking van rabiës onmiddellijk te melden bij de NVWA (NVIC). Het laatste geval van klassieke rabiës bij gezelschapsdieren in Nederland betrof een illegaal geïmporteerde pup uit Marokko in 2012.5
EBLV-1 en EBLV-2 zijn lyssavirussen die endemisch zijn bij twee van de achttien Nederlandse vleermuissoorten, namelijk EBLV-1 bij de laatvlieger (Eptesicus serotinus) en EBLV-2 bij de meervleermuis (Myotis dasycneme).6,7
EBLV-2 werd voor het laatst gedetecteerd in 1993, maar EBLV-1 wordt jaarlijks een aantal keer aangetoond bij laatvliegers die door WBVR onderzocht worden. Zie Tabel 2.17.1.
In Europa hebben tot op heden een aantal spillover-infecties plaatsgevonden, waarbij EBLV-1 bij andere dieren dan vleermuizen werd aangetoond, namelijk bij drie huiskatten in Frankrijk8, een steenmarter in Duitsland9 en bij schapen in Denemarken.10
In 2024 werd voor het eerst EBLV-1 aangetoond bij een huiskat in Nederland.11
2.17.2.4 EBLV-1 bij laatvliegers in Nederland
Bij een studie naar EBLV bij Nederlandse vleermuizen (1984-2003)12 bleek 20,6% van de onderzochte serotinevleermuizen (Eptesicus serotinus, laatvlieger) positief te zijn voor EBLV-1. Omdat de meeste onderzochte vleermuizen vermoedelijk ziek of verzwakt waren, is de waargenomen EBLV-1-prevalentie tijdens deze studie vrijwel zeker een overschatting van het daadwerkelijke voorkomen van EBLV-1 in de gezonde laatvliegerpopulatie in Nederland.
2.17.2.5 Risico voor mensen
Het risico voor de mens op infectie met EBLV is klein. Er zijn in de literatuur zes humane gevallen in Europa met dodelijke afloop beschreven.13 Daarom wordt direct contact met vleermuizen ontraden. Bij een verwonding (krab, kras of beet) door een vleermuis moet iemand meteen advies vragen aan de (Gemeentelijke gezondheidsdiensten) of huisarts voor een eventuele post-expositiebehandeling.6
2.17.3 Onderzoek naar de aanwezigheid van rabiës in 2025
2.17.3.1 Rabiës bij niet-vliegende zoogdieren
WBVR is in Nederland aangewezen als Nationaal referentielaboratorium (NRL) voor rabiësonderzoek bij dieren. De NVWA stuurt kadavers van niet-vliegende zoogdieren met een rabiësverdenking naar WBVR voor diagnostisch onderzoek van het hersenmateriaal. Diagnostiek vindt plaats met behulp van een immunofluorescentietest (IFT) en polymerase chain reaction-testen (PCR-testen).
Het kan gaan om symptomatische huisdieren, waaronder dieren die illegaal zijn geïmporteerd uit rabiës-endemische landen, of om asymptomatische huisdieren, recent geïmporteerd uit risicolanden, die betrokken waren bij een humaan bijtincident.
Daarnaast kan het ook gaan om in het wild levende, rabiësgevoelige dieren. Het hersenmateriaal wordt onderzocht na een melding van sterfte, of wanneer deze dieren voorafgaand aan hun dood neurologische ziekteverschijnselen vertoonden.
In 2025 werden tien huisdieren (negen katten en een hond) en vijftien in het wild levende dieren (dertien vossen, een steenmarter en een das) onderzocht. Bij geen van deze dieren werd het klassiek rabiësvirus aangetoond.
De dertien vossen, waarbij geen rabiësvirus werd aangetoond, werden daarna nog onderzocht op de aanwezigheid van het vogelgriepvirus (zie 2.5 Aviaire Influenza).
2.17.3.2 Rabiës bij vleermuizen
De NVWA stuurt ook vleermuizen in voor rabiësonderzoek. Sinds 2013 is het beleid om uitsluitend vleermuizen te laten onderzoeken na een humaan contactincident (beet, kras) of bij sterk vermoeden van direct contact tussen vleermuizen en mensen.
Bij contact tussen een vleermuis en een huisdier wordt de eigenaar naar een dierenarts doorverwezen voor vaccinatie van het huisdier.
In 2025 onderzocht WBVR twintig vleermuizen in opdracht van de NVWA. Drie daarvan testten positief op EBLV-1.
Daarnaast onderzoekt WBVR ziek of dood gevonden vleermuizen zonder humaan risicocontact op rabiës. Deze vleermuizen worden ingezonden door particulieren, dierenartsen of vleermuisopvangcentra. De data uit deze surveillance worden gebruikt om het rabiësrisico bij vleermuizen in Nederland in kaart te brengen. In 2025 onderzocht WBVR 94 vleermuizen waarvan er vier positief testten op EBLV-1.
2.17.3.3 Rapportage rabiës-positieve dieren
Tabel 2.17.1 geeft het aantal rabiës-positieve dieren weer dat getest is met een IFT en/of PCR-test, ten opzichte van het totaal aantal door WBVR onderzochte dieren (zowel na een NVWA-verdenking als in het kader van de surveillance).
De NVWA is verantwoordelijk voor de internationale rapportage van dieren die onderzocht worden op rabiës. De IFT is hierbij de gouden standaardtest. Deze test werd in het verleden aanbevolen door zowel de WHO als de WOAH (World Organisation for Animal Health). In mei 2018 heeft de WOAH ook PCR-testen aangewezen als volwaardig alternatief voor de IFT.
Sinds 2019 rapporteert de NVWA, naast vleermuizen die getest zijn met een IFT, ook vleermuizen die alleen door middel van PCR-testen zijn onderzocht.14,15
Tabel 2.17.1 Rabiës: Aantal positieve bevindingen (IFT en/of PCR) ten opzichte van het totaal aantal onderzochte dieren, zoals internationaal gerapporteerd door de NVWA.
| Diersoort | 2016 | 2017 | 2018 | 2019 | 2020 | 2021 | 2022 | 2023 | 2024 | 2025 |
|---|---|---|---|---|---|---|---|---|---|---|
| Vleermuizen | 9/26 | 9/24 | 2/20 | 5/55 | 5/38 | 0/49 | 1/47 | 1/41 | 5/45 | 7/114 |
| Vossen | 0/4 | 0/2 | 0/0 | 0/0 | 0/1 | 0/3 | 0/3 | 0/2 | 0/2 | 0/13 |
| Honden | 0/7 | 0/6 | 0/6 | 0/2 | 0/5 | 0/7 | 0/0 | 0/3 | 0/2 | 0/1 |
| Katten | 0/10 | 0/3 | 0/4 | 0/7 | 0/3 | 0/2 | 0/6 | 0/4 | 1/6 c | 0/9 |
| Andere diersoorten | 0/0 | 0/1 | 0/1 | 0/0 | 0/0 | 0/0 | 0/0 | 0/3 | 0/3 | 0/2 |
Literatuur:
- Hampson, P., et al. Estimating the global burden of endemic canine rabies. PLoS Negl Trop Dis. 2015; 9(4):e0003709
- Olivier Delmas, et al. Genomische diversiteit en evolutie van de lyssavirussen - PMC.PloS One 30 april 2008;3(4) e2057.
- ICTV, Genus: Lyssavirus | ICTV
- Dimmendaal, M., et al. Een patiënt met rabiës in public health perspectief. Infectieziekten Bulletin. 2019; 30(2)
- van Rijckevorsel, G.G., et al. Pup met rabiës via Marokko en Spanje naar Nederland geïmporteerd. Infectieziekten Bulletin. 2013, nummer 1; 8-10.
- LCI-richtlijn Rabiës.
- Vleermuis.net
- Dacheux, L., et al. European Bat Lyssavirus Transmission among Cats, Europe. Emerging Infectious Diseases. 2009; 15(2):280-284Naast de bevindingen bij katten in 2003 en 2007, werd EBLV in 2020 in Frankrijk bij een derde kat vastgesteld (persoonlijke mededeling: Emmanuelle Robardet, het Europese Unie Referentielaboratorium (EURL) voor dierhondsdolheid, ANSES, Frankrijk, oktober 2024).
- Müller, T., et al. Spill-over of European Bat Lyssavirus Type 1 into a Stone Marten (Martes foina) in Germany. Journal of Veterinary Medicine, Series B. 2004; 51:49-54
- Tjørnehø, J.K., et al. Natural and Experimental Infection of Sheep with European Bat Lyssavirus Type-1 of Danish Bat Origin. Journal of Comparative Pathology. 2006; 134(2-3): 190-201
- Eblé, P.L., et al. A case report of a cat infected with European bat lyssavirus type 1, the Netherlands, October 2024. Euro Surveill. 2025;30(10).
- Van der Poel, W.H.M., et al., European bat lyssaviruses, The Netherlands. Emerg Infect Dis. 2005;11(12):1854-9.
- Lina, P.H.C. Rabiës bij vleermuizen. Tijdschrift Natura van de KNNV (Vereniging voor veldbiologie). 2021, nummer 1; 10-12.
- WOAH, Manual of Diagnostic Tests and Vaccines for Terrestrial Animals, 2021
- Rabies vaccines: WHO position paper – April 2018. Weekly Epidemiological Record. 2018; 93:201–220
2.18 Salmonellose
2.18.1 Hoofdpunten
- In 2025 werden Salmonella-isolaten van in totaal 1.736 salmonellose-patiënten ingestuurd naar het (Rijksinstituut voor Volksgezondheid en Milieu). Dat is meer dan in 2023 en 2024, toen het aantal ook al hoger was dan voor de coronapandemie.
- Sinds de tweede helft van 2023 is het aantal patiënten met S. Enteritidis sterk toegenomen vergeleken met de jaren 2015 tot 2019. In 2025 werden 694 patiënten met deze variant gemeld: het hoogste aantal sinds 2004.
- Het aantal patiënten met S. Typhimurium (n=187) was vergelijkbaar met eerdere jaren (behalve tijdens de coronapandemie). Het aantal patiënten met de ‘monofasische’ variant van S. Typhimurium (n=91) was juist opvallend laag.
- De stijging van S. Enteritidis wordt gekarakteriseerd door een grote diversiteit aan genotypen en kleine clusters. Dit wijst op een brede en diverse bron van besmetting, vooral vanuit de primaire productie van consumptie-eieren door leghennen, die de belangrijkste bron vormen van S. Enteritidis.
- In totaal is er bij drie clusters uitbraakonderzoek gedaan (2x S. Enteritidis, 1x S. Typhimurium). Alle drie de clusters kwamen vanzelf ten einde, voordat de bron definitief kon worden vastgesteld.
2.18.2 Wat is salmonellose?
Salmonellose is een infectieziekte die wordt veroorzaakt door een Salmonella-bacterie. Veel dieren, waaronder landbouwhuisdieren, dragen Salmonella-bacteriën bij zich waar mensen ziek van kunnen worden. Deze dieren hebben zelf vaak geen klachten en scheiden de bacteriën uit via de ontlasting. Mensen kunnen dan besmet raken door direct of indirect contact met besmette dieren of hun uitwerpselen (feco-oraal).
De meeste salmonellabesmettingen worden opgelopen door het eten van besmette dierlijke producten (bijv. vlees of eieren). Maar ook milieuroutes en kruisbesmetting in de keuken spelen waarschijnlijk een rol. Infecties met Salmonella kunnen leiden tot gastro-enteritis met buikpijn, diarree en bloed bij de ontlasting. Ook kan salmonellose griepachtige klachten geven. Antibioticabehandeling wordt alleen geadviseerd bij risicogroepen met een verhoogd risico op complicaties en bij invasieve infecties (sepsis, bacteriëmie).
2.18.2.1 Non-typhoidale Salmonella
Deze tekst gaat over de Salmonella-bacteriën die vooral gastro-enteritis veroorzaken. Deze worden aangeduid als non-typhoidale Salmonella. De meeste hiervan behoren tot de Salmonella enterica-subspecies enterica. Hierbinnen wordt een onderverdeling gemaakt in serotypen op basis van verschillen in O- en H-antigenen, zoals S. Typhimurium (= Salmonella enterica subsp. enterica serotype Typhimurium) en S. Enteritidis.
2.18.2.2 Kiem-surveillance
Individuele gevallen van salmonellose bij mensen zijn in Nederland niet meldingsplichtig, in tegenstelling tot verschillende andere Europese landen. Alleen clusters van twee of meer gerelateerde gevallen met besmet voedsel of drinkwater als bron, zijn meldingsplichtig.
Inzicht in de trend van salmonellose wordt verkregen via kiem-surveillance door het Nationaal Referentielaboratorium voor bacteriële voedselinfecties binnen het Centrum Infectieziektebestrijding (CIb) van het (Rijksinstituut voor Volksgezondheid en Milieu). Dit was altijd gebaseerd op isolaten die de voormalig benoemde streeklaboratoria instuurden. Maar de toekenning van streeklaboratoria bestaat niet meer en afgelopen jaren hebben er veel fusies plaatsgevonden van medisch-microbiologische laboratoria. Daarom is er in 2023 voor gekozen om alle isolaten die laboratoria insturen mee te nemen in het bepalen van de incidentie – en dus niet meer alleen die van de streeklaboratoria. Het aantal ingezonden isolaten door streeklaboratoria wordt daarmee sinds 2023 niet meer gerapporteerd. Met terugwerkende kracht zijn voor eerdere jaren de aantallen isolaten die zijn ingestuurd ook bepaald op basis van alle laboratoria die insturen. Omdat niet alle laboratoria insturen is de surveillance niet landelijk dekkend. Dit betekent dat de aantallen in dit hoofdstuk afwijken van wat er in de jaren vóór 2023 is gerapporteerd.
2.18.2.3 Whole genome sequencing
Sinds 2021 worden alle Salmonella isolaten in silico geserotypeerd op basis van analyse van het hele genoom, bepaald door whole genome sequencing (WGS). Voor sommige serotypen wordt aanvullende confirmatie van de seroformule uitgevoerd door middel van agglutinatie met antisera. WGS data wordt ook gebruikt om de Salmonella-isolaten verder te typeren voor monitoring, uitbraakonderzoek en brononderzoek.
Trends van Salmonella-infecties bij de mens worden het best beschreven in relatie tot hun bronnen. Als Nationaal Referentie Centrum voor Salmonella ontvangt het RIVM ook isolaten voor typering afkomstig van landbouwhuisdieren, huisdieren, milieu en voedsel. Ook worden isolaten voor typering ingestuurd door de Faculteit Diergeneeskunde, dierentuinen, voedselindustrie en diervoederindustrie. Isolaten uit voedingsmiddelen bemonsterd binnen monitoringsprogramma’s, op boerderijen, slachthuizen, import en detailhandel, worden grotendeels door Wageningen Food Safety Research (WFSR) verkregen en getypeerd, in opdracht van de (Nederlandse Voedsel- en Warenautoriteit).
2.18.3 Trends in salmonellose bij de mens
2.18.3.1. Incidentie en serotypen
In 2025 bedroeg het totaal aantal ingestuurde Salmonella isolaten van humane patiënten 1763 (Tabel 2.18.1). Dit is hoger dan in 2024 (n=1666) en 2023 (n=1511), en ook hoger dan voor de pandemie 2016-2019 (gemiddeld 1311 patiënten, spreiding: 1225-1540).
Net als in voorgaande jaren zijn in 2025 de meest voorkomende veroorzakers van salmonellose bij mensen de serotypen:
- Enteritidis
- Typhimurium
- monofasische Typhimurium
Het aantal patiënten met S. Enteritidis was net als in 2024 (n=641) en 2023 (n=585) sterk verhoogd in 2025 (n=694) ten opzichte van 2016-2019 (gemiddeld: 374; spreiding: 311-441) (Tabel 2.18.1 en Fig. 2.18.1). De toenemende trend voor Enteritidis was reeds zichtbaar in 2019 maar werd onderbroken door de coronapandemie. De algemene verheffing sinds 2023 is grotendeels gerelateerd aan een toename van de S. Enteritidis prevalentie onder Nederlandse leghennen en de consumptie van besmette eieren hiervan.1
Het aantal patiënten met Typhimurium was in 2025 (n=187) net als in 2024 (n=199) hoger dan in 2023 (n=134), toen het aantal sterk gedaald was ten opzichte van 2016-2019 (gemiddeld: 210; spreiding: 149-263). Het aantal patiënten met monofasische S. Typhimurium was in 2025 opvallend laag (n=91) ten opzichte van 2024 (n=144) en 2023 (n=130), toen het aantal ook al lager was dan in 2016-2019 (gemiddeld: 199; spreiding: 157-245). De oorzaak hiervan is onbekend.
In totaal was, voor zover bekend, het aandeel reis-gerelateerde salmonellose vergelijkbaar met 2024 (19%).
Tabel 2.18.1 Absolute aantallen Salmonella enterica isolaten - totaal en per belangrijkste serotype - ontvangen door het RIVM in de humane kiemsurveillance. Alle andere serotypes zijn samengevoegd onder ' overige' (Bron: Laboratoriumsurveillance RIVM).
| Jaar | 2021 | 2022 | 2023 | 2024 | 2025 | Reis (2025)* |
|---|---|---|---|---|---|---|
| Totaal aantal | 863 | 1126 | 1516 | 1665 | 1736 | 19% |
| Serotypes | ||||||
| Enteritidis | 203 | 337 | 584 | 619 | 694 | 14% |
| Typhimurium | 173 | 112 | 134 | 197 | 187 | 12% |
| SI 1,4,5,12:i:2- | 115 | 93 | 121 | 145 | 91 | 9% |
| Overige | 372 | 584 | 677 | 704 | 764 | 26% |
Figuur 2.18.1 Trend in relatief aandeel ten opzichte van het totale aantal gerapporteerde Salmonella gevallen van S. Enteritidis, S. Typhimurium en monofasische S. Typhimurium (bron: Laboratoriumsurveillance RIVM).
2.18.3.2 Clustering en uitbraken
WGS wordt sinds 2019 gebruikt voor karakterisering en typering voor alle S. Enteritidis-isolaten, sinds 2020 voor S. Typhimurium en sinds 2020 ook voor alle andere serotypen. Hierop wordt clusteranalyse met behulp van core genome Multi Locus Sequence Typing (cgMLST) uitgevoerd om groepen patiënten met identieke stammen te identificeren. Een identieke stam duidt op een gemeenschappelijke bron. Hieronder een overzicht van het aantal clusters per serotype. S. Enteritidis en (monofasische) S. Typhimurium isolaten die op basis van WGS typering 5 allelen of minder verschillen behoren tot hetzelfde cluster. Voor overige serotypen wordt een afkapwaarde van 7 allelen gehanteerd., omdat deze over het algemeen een hogere genetische variatie hebben dan S. Enteritidis en (monofasische) S. Typhimurium, maar ook omdat ze minder voorkomend zijn en er daardoor een nadruk ligt op sensitiviteit. Dit clusteren kan ook met isolaten uit eerdere jaren zijn:
- Van de humane S. Enteritidis isolaten in 2025 clusterde 79 procent (n=574) met tenminste één ander humaan isolaat. Dit kunnen ook isolaten van eerdere jaren zijn. Het ging om 96 verschillende clusters, gemiddeld met 20 patiënten per cluster (mediaan: 4,5; maximaal: 270). Deze toename in 2025, net als in 2024, kwam vooral door veel kleine clusters, wat het opsporen van de bron moeilijk maakt.1 In 2023 was er vooral één groot cluster.2
- Van de S. Typhimurium isolaten clusterde 73 procent (n=137) met een ander humaan isolaat, met in totaal 32 clusters met een gemiddelde clustergrootte van 7 isolaten (mediane grootte: 3; maximale grootte: 36).
- Van de monofasische S. Typhimurium clusters ging het om 40% (n=36), verdeeld over 17 clusters (gemiddeld 5 per cluster; mediaan: 3; maximaal: 16).
- Bij de overige serotypen Salmonella clusterde 45% (n=344) met een ander humaan isolaat, verdeeld over 119 clusters (gemiddeld 7 per cluster; mediaan: 3; maximaal: 144).
In totaal is er bij drie clusters/uitbraken een uitbraakonderzoek uitgevoerd:
- Groot cluster van S. Enteritidis
Sinds juni 2025 werd een groeiend cluster van S. Enteritidis gevonden binnen de algemene stijging. In totaal ging het om 80 patiënten in 2025. Waar de algemene stijging vooral samenhing met consumptie van eieren, wees vragenlijstonderzoek bij dit cluster juist sterk richting kippenvlees als bron. De uitbraak stopte echter vanzelf, voordat de precieze bron werd gevonden.
- Tweede van S. Enteritidis
In november 2025 werd een cluster van 36 patiënten onderzocht (1 in 2023, 35 in 2025). De meeste patiënten werden gemeld in september (8) en oktober (10). Er werden meerdere Salmonella isolaten gevonden die genetisch verwant waren aan dit cluster, waaronder isolaten van een leghenbedrijf. Uit nader onderzoek bleek echter dat dit bedrijf in 2025 niet meer bestond, waardoor deze isolaten niet de oorzaak van de uitbraak konden zijn. Het cluster bleek verwant aan één van drie clusters binnen een eerdere Europese uitbraak in 2023 die te maken had met kipkebab (3). Ook deze uitbraak in 2025 kwam vanzelf tot een einde.
- Cluster van S. Typhimurium
In oktober 2025 werd een cluster van 15 patiënten gevonden. Vragenlijstonderzoek suggereerde rundvlees, vooral filet americain, als waarschijnlijke bron. Tegen de tijd dat dit bekend was, waren er geen nieuwe patiënten meer en kon de bron niet meer worden vastgesteld.
2.18.4 Salmonella bij landbouwhuisdieren
Naast surveillance van Salmonella bij de mens, vindt ook monitoring plaats van dieren en dierlijke producten binnen verschillende programma’s en projecten. De (Nederlandse Voedsel- en Warenautoriteit) monitort in de gehele levensmiddelenketen, van primaire productiebedrijven tot in de detailhandel, op wettelijke limieten en criteria, met als doel het volgen van trends en het signaleren van nieuwe risico’s. In de verschillende vleesketens controleert de NVWA o.a. op naleving van verplicht eigen onderzoek (Microbiologische criteria voor levensmiddelen Verordening (EG) nr. 2073/2005) en neemt de NVWA monsters ter verificatie. WFSR onderzoekt deze monsters.
2.18.4.1 Landbouwhuisdierenmonitoringsprogramma’s
Tabel 2.18.2 laat de ontwikkeling van de belangrijkste Salmonella-serotypen onder landbouwhuisdieren zien. Deze cijfers komen uit het algemeen monitoringsprogramma van de NVWA/WFSR en de laboratoriumsurveillance van het (Rijksinstituut voor Volksgezondheid en Milieu). Bij verschillende diersoorten domineerden verschillende serotypen:
- Bij varkens: S. Typhimurium en haar monofasische variant.
- Bij runderen: S. Dublin en S. Newport.
- Bij vleeskuikens: S. Infantis en S. Paratyphi B var. Java gevolgd door S. Enteritidis.
- Bij leghennen: S. Enteritidis. Net als in 2023 en 2024 is in 2025 sprake van een significante stijging van S. Enteritidis t.o.v. vorige jaren.
Deze gegevens zijn verwerkt in de bronattributie (zie 2.18.6).
Alle (Europese unie)-lidstaten moeten volgens de Zoönosenrichtlijn (2003/99/EC) informatie verzamelen over de aanwezigheid en trends van zoönoseverwekkers bij de mens, dieren en (dierlijke) producten. Hierover moeten ze jaarlijks rapporteren aan (European Centre for Disease Prevention and Control) (humaan) en EFSA (dier en dierlijke producten). In dit kader voert het RIVM in samenwerking met de NVWA een surveillanceprogramma naar zoönotische agentia bij landbouwhuisdieren uit. In 2024 werden van 114 bedrijven met vleesvarkens mestmonsters onderzocht op Salmonella:
- Op 10 bedrijven (4,7%) werd Salmonella aangetoond.
- Op 3 bedrijven is S. Typhimurium gevonden.
- Op 4 andere bedrijven S. Brandenburg gevonden.
- Op 2 bedrijven is S. monofasische Typhimurium gevonden.
- Op 1 bedrijf is S. Derby gevonden.
Tevens werden op deze vleesvarkenbedrijven drinkwater (2/203, 1,0% > S. Typhimurium) en voer (1/211, 0,5% S. Typhimurium) onderzocht op Salmonella.
Tabel 2.18.2 Absolute aantallen Salmonella enterica isolaten (totaal en per serotype) bij landbouwhuisdieren (Bron: Monitoring programma's NVWA / WFSR en laboratoriumsurveillance RIVM).
| Jaar | 2021 | 2022 | 2023 | 2024 | 2025 | |||||||||||||||
|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|
| Serotypen | V | R | S | L | V | R | S | L | V | R | S | L | V | R | S | L | V | R | S | L |
| Totaal aantal | 129 | 55 | 263 | 66 | 54 | 105 | 239 | 67 | 101 | 86 | 303 | 188 | 40 | 125 | 359 | 225 | 63 | 58 | 331 | 172 |
| Typhimurium | 16 | 15 | 11 | 1 | 8 | 27 | 12 | 9 | 14 | 28 | 11 | 7 | 10 | 13 | 10 | 9 | 8 | 5 | 15 | 2 |
| SI 1,4,5,12:i:- | 41 | 3 | 3 | 10 | 18 | 12 | 1 | 30 | 5 | 16 | 10 | 3 | 12 | 20 | 1 | 10 | 1 | |||
| Enteritidis | 4 | 27 | 39 | 5 | 21 | 36 | 2 | 29 | 145 | 2 | 66 | 174 | 6 | 25 | 139 | |||||
| Infantis | 3 | 93 | 3 | 10 | 69 | 3 | 1 | 60 | 5 | 74 | 4 | 1 | 86 | 1 | ||||||
| Paratyphi B var. Java | 49 | 24 | 48 | 70 | 83 | 1 | ||||||||||||||
| Heidelberg | 16 | 6 | 1 | |||||||||||||||||
| Derby | 35 | 2 | 9 | 3 | 1 | 28 | 29 | 8 | 3 | 17 | 5 | |||||||||
| Dublin | 23 | 47 | 1 | 26 | 1 | 1 | 25 | 9 | ||||||||||||
| Brandenburg | 8 | 1 | 1 | 1 | 11 | 3 | 1 | 2 | 5 | 1 | ||||||||||
| Agona | 1 | 3 | 2 | 6 | 2 | 5 | 3 | 4 | ||||||||||||
| Livingstone | 2 | 3 | 3 | 3 | 2 | 1 | ||||||||||||||
| Minnesota | 3 | 15 | 18 | |||||||||||||||||
| Kedougou | 1 | 1 | 1 | 1 | 2 | 2 | 2 | |||||||||||||
| Goldcoast | 7 | 1 | 1 | 4 | 3 | 2 | 1 | 1 | 3 | 1 | 1 | 1 | ||||||||
| Mbandaka | 1 | 8 | 1 | 5 | 1 | 9 | 4 | 2 | 24 | 11 | 22 | 2 | ||||||||
| Anatum | 7 | 2 | 7 | 1 | ||||||||||||||||
| Braenderup | 1 | 3 | 1 | 1 | 6 | 4 | 1 | 4 | ||||||||||||
| Rissen | 1 | 5 | 1 | 1 | 1 | 1 | 4 | |||||||||||||
| Indiana | 8 | 2 | 3 | 1 | ||||||||||||||||
| Newport | 1 | 2 | 1 | 4 | 2 | 39 | 2 | 2 | 1 | |||||||||||
| Montevideo | 2 | 1 | 1 | 4 | 1 | |||||||||||||||
| Bovismorbificans | 2 | 1 | 7 | 2 | 11 | 2 | 1 | 31 | 18 | |||||||||||
| Kottbus | 2 | 4 | 1 | 7 | 1 | |||||||||||||||
| Virchow | 1 | 3 | 13 | 32 | 1 | 23 | 7 | 34 | ||||||||||||
| Senftenberg | 5 | 1 | 1 | 7 | 1 | 1 | 5 | 2 | 2 | 4 | 2 | 4 | ||||||||
| Overig | 13 | 1 | 40 | 8 | 3 | 3 | 18 | 15 | 6 | 5 | 43 | 14 | 1 | 7 | 13 | 16 | 8 | 3 | 35 | 7 |
2.18.4.2 Monitoring pluimvee
Voor pluimvee geldt een monitoringsplicht en een meldplicht voor (vermoeden van) positieve monsters met – afhankelijk van de productiecategorie:
- S. Enteritidis
- S. Typhimurium, waaronder monofasische S.Typhimurium met de antigene formule 1,4,[5],12:i:-
- S. Hadar
- S. Infantis
- S. Virchow
- S. Paratyphi B. var. Java
Als een bedrijf Salmonella aantoont, moet het dit melden bij de NVWA. Deze meldingsplicht gaat op stalniveau, dus per groep kippen die bij elkaar zitten (dit heet een koppel), en wordt als zodanig afgehandeld.
Legkoppels
Voor legkoppels geldt een wettelijke monitoringsplicht: minstens eens in de vijftien weken moeten monsters worden genomen. Dit mag de pluimveehouder zelf doen. Voor pluimveehouders aangesloten bij IKB EI geldt dat zij een hogere frequentie moeten aanhouden. Van januari 2025 tot oktober 2025 werden koppels met dieren ouder dan 65 weken minstens elke 8 weken bemonsterd. Vanaf oktober 2025 is de frequentie elke 8 weken bij koppels met dieren tot 65 weken leeftijd en elke 4 weken bij koppels ouder dan 65 weken. Dit is ingeregeld naar aanleiding van de voortdurende prevalentie van >2% op jaarbasis. In de laatste drie weken voor de slacht wordt het koppel bemonsterd door een dierenarts. De monsters worden ingestuurd naar een erkend laboratorium voor onderzoek op de aanwezigheid van S. Enteritidis en (monofasische) S. Typhimurium.
In 2025 zijn er van de in totaal 2.383 koppels 119 besmet verklaard:
- 115 keer S. Enteritidis
- 4 keer S. Typhimurium
Er is sinds 2023 sprake van een voortdurend gestegen prevalentie: het percentage leghennenkoppels dat besmet is verklaard met deze twee serotypen bedraagt 4,99%. De oorzaak is (nog) niet achterhaald. Hiernaar zijn verschillende onderzoeken opgestart.
Vermeerderingskoppels
Voor vermeerderingskoppels geldt een monitoringsplicht waarbij minstens eens in de drie weken monsters moeten worden genomen. Dit mag de pluimveehouder zelf doen. De monsters worden ingestuurd naar een erkend laboratorium voor onderzoek op S. Enteritidis, (monofasische) S. Typhimurium, S. Infantis, S. Hadar, S. Virchow en voor ouderdieren van vleeskuikens ook S. Paratyphi B var. Java. In 2025 zijn van de in totaal 1.218 koppels er 14 besmet verklaard (11 keer S. Enteritidis, 2 keer S. Typhimurium en 1x S. Hadar ).
Vleeskuikens
Voor vleeskuikens geldt een monitoringsplicht waarbij in de eerste drie levensdagen monsters moeten worden genomen. Dit mag de pluimveehouder zelf doen. In de laatste drie weken voor de slacht moet een dierenarts een monster nemen. De monsters worden ingestuurd naar een erkend laboratorium voor onderzoek op de aanwezigheid van Salmonella spp. en verplichte typering t.a.v. S. Enteritidis en (monofasische) S. Typhimurium (EU-regelgeving) en S. Hadar, S. Infantis, S. Virchow en S. Paratyphi B var Java (NL-regelgeving).
In 2025 zijn van de in totaal 16.222 koppels 36 besmet bevonden met de EU-verplichte serotypen:
- 23 keer S. Enteritidis
- 13 keer S. Typhimurium, waaronder monofasische S. Typhimurium.
In 506 koppels werden er andere Salmonella spp. aangetoond:
- 213 S. Infantis
- 48 S. Virchow
- 153 S. Paratyphi B var. Java
- 74 overig
2.18.5 Salmonella in levensmiddelen
De NVWA bemonstert en de WFSR onderzoekt jaarlijks voor een groot aantal levensmiddelen of zij voldoen aan een eventuele norm van afwezigheid van Salmonella. Wat betreft voedsel gelden verschillende voedselveiligheidsregels:
- In gehakt vlees en vleesbereidingen (gekruid of gemarineerd) van pluimvee en andere diersoorten mag geen enkel Salmonella-serotype worden gevonden.
- Dat geldt ook voor andere levensmiddelen dan vlees waarvan mensen verwachten dat ze deze zonder ze te verhitten kunnen eten (groenten, verse kruiden, zuivel, etc.).
- Op rauw naturel pluimveevlees mag geen S. Enteritidis of S. Typhimurium aanwezig zijn.
- Voor alle andere typen rauw vlees, waarbij de verwachting is dat mensen ze goed verhitten voor het eten ervan, geldt geen afwezigheidsplicht voor Salmonella.
In Tabel 2.18.3 staat een overzicht van het onderzoek in de detailhandel van kippenvlees. In 4,0% (17/428) en 4,6% (9/196) van respectievelijk vers kippenvlees en vleesbereidingen uit de detailhandel werd Salmonella aangetoond. In kippenvlees betrof het:
- 7x S. Paratyphi B var. Java
- 6x S. Infantis
- 2x S. Virchow
- 1x onbekend
Voor kippenvleesbereidingen betrof het:
- 3x S. Virchow
- 2x S. Infantis
- 2x S. Enteritidis
- 1x S. Newport
- 1x S. Heidelberg
Tabel 2.18.3 Salmonella spp. in kippenvlees in de detailhandel (Bron: Monitoring programma's NVWA / WFSR)
| Jaar | 2021 | 2022 | 2023 | 2024 | 2025 | |||||
|---|---|---|---|---|---|---|---|---|---|---|
| V | Vb | V | Vb | V | Vb | V | Vb | V | Vb | |
| Samplegrootte | 315 | 306 | 192 | 188 | 192 | 196 | 403 | 200 | 428 | 196 |
| % Salmonella spp. | 4,4 | 3,9 | 3,1 | 3,7 | 2,1 | 4,1 | 2 | 4,5 | 4 | 4,6 |
| Paratyphi B Java (%) | 14,3 | 8,3 | 16,7 | 14,3 | 25 | 67 | 44 | 41 | 33 | |
| Enteritidis (%) | 8,3 | 16,7 | 12,5 | 35 | 22 | |||||
| Hadar (%) | ||||||||||
| Indiana (%) | ||||||||||
| Infantis (%) | 78,5 | 75 | 66,7 | 71,4 | 75 | 50 | 22 | 22 | 35 | 22 |
| Virchow (%) | 7,1 | 8,3 | 25 | 12,5 | 18 | |||||
| Typhimurium (5) | ||||||||||
| Andere types (%) | 14,3 | 11 | 34 | 6 | 22 | |||||
Tabel 2.18.4 geeft een overzicht van de andere soorten (rauw) vlees die werden onderzocht uit de detailhandel en voor rund/kalf en Ready to Eat (RTE)-vlees ook in de groothandel. Het gaat hier om vers vlees en vleesbereidingen van rund of kalf, varken, lam, geit en niet-alledaagse diersoorten. Hoewel er geen normen voor Salmonella gelden voor vers vlees van deze diersoorten, volgt de NVWA wel de aanwezigheid van onder andere Salmonella in dit type product. In gehakt vlees, vleesbereidingen en vleesproducten mag géén Salmonella zitten.
- In de 284 monsters vers varkensvlees werd 1x S. Derby aangetoond.
- In de 126 monsters van vers lams- en geitenvlees werd 1x Salmonella enterica subsp. diarizonae 61:k:1:5:(7) gedetecteerd.
- Alle monsters van vleesbereidingen (n= 50) waren negatief voor Salmonella.
- In de 457 monsters van vers rund/kalfsvlees was de prevalentie 0,2% in 2025. Het betrof 2x S. Dublin.
- In de 96 monsters niet alledaagse diersoorten (bijv. eend, fazant, hert en konijn) uit de detailhandel en groothandel werd 3x Salmonella gedetecteerd in eendenvlees: 1x S. Enteritidis, 1x S. Kottbus en 1x S. Indiana.
- In 225 partijen rauw te eten vlees, zoals filet américain, tartaar en carpaccio uit de detailhandel en groothandel, werd geen Salmonella aangetoond.
- In 110 monsters vleesproducten uit de detailhandel, namelijk paté (n=48), droge worsten (n=52) en rauwe ham (n=10), werd geen Salmonella aangetoond.
Ook voor levensmiddelen waarvan mensen verwachten dat ze deze zonder ze te verhitten kunnen eten, geldt dat er geen Salmonella in mag zitten. Voor de detailhandel en/of groothandel gold in 2025:
- In de 50 halffabrikaat deegproducten, blader-, taart-, pizza-, croissant- of flammkuchendeeg, werd in 1 monster (2,0%) pizzadeeg een S. Enteritidis gevonden.
Er werd geen Salmonella gevonden in de overige categorieën onderzochte levensmiddelen, namelijk:
- 474 monsters Ready to Eat (RTE)-groenten, 181 monsters maaltijdsalades, 90 monsters paddenstoelen, 178 monsters wokgroenten en 11 partijen kiemgroenten.
- 44 partijen vers fruit en 47 partijen bevroren fruit.
- 268 monsters gekookte en RTE schaal-, schelpdieren en garnalen uit de detailhandel en groothandel en 259 partijen levende schelpdieren, mosselen, oesters en pecten uit de detailhandel en de groothandels.
- 52 hummus en 45 tahin monsters.
- 115 monsters “alternatieve eiwitten” zoals vlees- en zuivelvervangers.
- 76 monsters sushi, genomen in restaurants, afhaal centra of detailhandel.
Naast de verplichte analyses op Salmonella wordt er ook toezicht gehouden op de aanwezigheid van Salmonella in verschillende importproducten:
- Bij ingevroren geïmporteerde gekweekte vis , niet alledaagse vissoorten en tropische garnalen (totaal 196 monsters) werd in 2 partijen tijgergarnalen uit Vietnam, 1x S. Indiana en 1x S. Weltevreden, gevonden. In 149 monsters import “wildvang” vis werd geen Salmonella aangetoond.
- In 19 partijen geïmporteerd exotisch vlees of vlees van niet alledaagse diersoorten, hert, ree werd geen Salmonella gedetecteerd.
- In 54 geïmporteerde partijen kip bereiding, vooral kipfilet met 2% zout in 1 partij uit Thailand, werd 1x S. Infantis gevonden.
- In 22 partijen geïmporteerd roodvlees werd geen Salmonella gedetecteerd.
- Bij 56 geïmporteerde partijen gedroogde kruiden werd in een partij peterselie uit Egypte S. Newport gevonden en een niet te typeren Salmonella in sesamzaad uit Paraguay.
Tabel 2.18.4 Aanwezigheid Salmonella in 25 g rauw vlees in de detailhandel (Bron: Monitoringprogramma's NVWA / WFSR).
| 2021 | 2022 | 2023 | 2024 | 2025 | ||||||
|---|---|---|---|---|---|---|---|---|---|---|
| N | % | N | % | N | % | N | % | N | % | |
| Rund en Kalf* | 593 | 0,2 | 185 | 0,0 | 284 | 0,7 | 463 | 0,4 | 461 | 0,4 |
| RTE-vlees** | 172 | 0,6 | 84 | 1,2 | 152 | 0,0 | 201 | 0,0 | 225 | 0,0 |
| Varken | 321 | 0,9 | 186 | 0,5 | 291 | 0,3 | 274 | 0 | 284 | 0,4 |
| Lam/geit/schaap | 308 | 0,3 | 153 | 0 | 168 | 0 | 181 | 0,7 | 179 | 0,6 |
2.18.6 Bronnen van besmetting
De meeste Salmonella-infecties worden veroorzaakt door het eten van besmet voedsel, zoals:
- eieren die niet genoeg verhit zijn
- rauwe vleesproducten
- ongepasteuriseerde zuivelproducten
- kruisbesmetting
- heel soms: (voorgesneden) rauwe groenten en fruit
Figuur 2.18.2 laat de geschatte bijdragen zien aan salmonellose bij mensen door reizen, landbouwhuisdieren en hun producten. Het bronattributiemodel schat de frequentiedistributie van serotypen bij de mens op basis van de frequentie onder de bronnen. Daarbij wordt ook gekeken naar de hoeveelheid voedsel die is gegeten, de besmettingsgraad en de fractie van het voedsel dat rauw of goed doorbakken wordt gegeten. Ook wordt het deel meegenomen dat wordt veroorzaakt door reptielen die als huisdier worden gehouden en waarbij besmetting optreedt via direct contact met de dieren of contact met een door de reptielen besmette omgeving (terrarium). Het aandeel reisgerelateerde infecties is waarschijnlijk een onderschatting omdat dit vaak niet wordt gerapporteerd. Echter, sinds 2025 worden patiënten ook beschouwd als reisgerelateerd wanneer ze tot een cluster behoren waarvan bekend is dat hij gerelateerd is aan het buitenland. In eerdere jaren werd dit niet gedaan. Het aandeel reisgerelateerde infecties valt daardoor in 2025 hoger uit.
Opvallend is de duidelijke toename van het relatieve belang van leghennen als bron voor salmonellose bij mensen (Figuur 2.18.2). Deze trend is in 2019 ingezet en zet zich voort in 2025. Deze bedroeg in 2025 32% van alle Salmonella-infecties bij mensen. Dit is in lijn met de gestegen aanwezigheid van S. Enteritidis – die vooral leghennen als drager heeft (zie 2.18.4.1) – en de toename in het aantal legkoppels dat positief is voor Enteritidis (zie 2.18.4.2).
Figuur 2.18.2 Geschatte bijdrage aan de humane, laboratoriumbevestigde salmonellose (linker y-as) door reizen (of onbekend), landbouwhuisdieren of hun producten. Omvangrijke explosies (grote uitbraken) die niet representatief zijn voor de Salmonella-status van de Nederlandse vee- en pluimveestapel, zijn in geel aangegeven (Bron: Laboratoriumsurveillance RIVM).
2.18.6 Resistentie bij Salmonella
Antibioticagebruik en -resistentie bij dieren en mensen in Nederland in 2025 wordt beschreven in de NethMap One Health-rapportage die in het najaar 2025 uitkomt. De rapportage over 2024 is beschikbaar.
2.18.7 Conclusie
In 2025 lag het aantal laboratorium-bevestigde Salmonella-infecties bij mensen opnieuw hoger dan in de jaren vóór de coronapandemie.
Net als in voorgaande jaren waren de serotypen Enteritidis, Typhimurium en monofasische Typhimurium de belangrijkste veroorzakers van salmonellose. Opvallend is vooral de aanhoudende toename van het aantal infecties met S. Enteritidis, die sinds medio 2023 duidelijk zichtbaar is. Deze ontwikkeling hangt nauw samen met een toename van S. Enteritidis onder Nederlandse leghennen, die met eieren de belangrijkste bron vormen van dit serotype. In tegenstelling tot 2023, toen een grote uitbraak de stijging grotendeels verklaarde, wordt de hoge incidentie van S. Enteritidis in 2025 vooral veroorzaakt door veel kleinere clusters.
Het aantal patiënten met S. Typhimurium is in 2025 gelijk ten opzichte van het voorgaande jaar, na een eerdere daling, terwijl het aantal infecties met de monofasische variant van S. Typhimurium juist opvallend laag was.
Literatuur:
- van den Berg OE, Adriaansens DL, Lanzl MI, Mooijman K, van Hoek AH, Brandwagt DA, et al. Ongoing increase in autochthonous Salmonella Enteritidis infections, the Netherlands, June 2023 to June 2025. Euro Surveill. 2025;30(30).
- Adriaansens DL, van den Berg OE, Lanzl MI, van der Weijden C, van Dommelen M, Nagel K, et al. The role of contaminated eggshells used in poultry feed in a diffuse nationwide outbreak of Salmonella Enteritidis, the Netherlands, 2023 to 2025. Euro Surveill. 2026;31(9).
- European Centre for Disease Prevention and Control, European Food Safety Authority. Three clusters of Salmonella Enteritidis ST11 infections linked to chicken meat and chicken meat products - 26 October 2023. 2023.
2.19 STEC
2.19.1 Hoofdpunten
- In 2025 werden 649 personen met een STEC-infectie gemeld. Dit is vergelijkbaar met vorig jaar (642 meldingen) en daarmee nog steeds het hoogste aantal meldingen en incidentie sinds de laatste wijziging van de meldingscriteria in 2016.
- 17 patiënten (2,6%) ontwikkelden het hemolytisch uremisch syndroom (HUS).
- Eén patiënt (0,2%) overleed direct of indirect aan de gevolgen van de STEC-infectie.
- Van 304/649 STEC-patiënten heeft het (Rijksinstituut voor Volksgezondheid en Milieu) een positief fecesmonster of isolaat ontvangen. Hiervan konden 124 niet worden gekweekt of worden bevestigd als STEC. De meest gevonden serotypen waren O157 (n=59), O26 (n=37), O103 (n=14), O145 (n=13) en O146 (n=8).
- Op basis van WGS werden in totaal 29 clusters geïdentificeerd met 72 van de 180 humane STEC isolaten uit 2025.
- Op 72 van de 100 onderzochte vleesvarkenbedrijven (72%) werd in mengmestmonsters STEC aangetoond.
- WFSR testte 55 van 2.764 onderzochte voedselmonsters positief op STEC. Van de 1.220 rauwe vleesmonsters was 3,8% positief, voor vleesproducten bestemd voor directe consumptie bedroeg dit 1,5% (5/333). Lamsvlees en vlees van hert, ree en zwijn vertoonden de hoogste prevalentie van STEC. Van de 1211 niet-vlees monsters werden slechts vier monsters positief bevonden, alle afkomstig uit deegwaren.
2.19.2 Wat is STEC?
Shiga toxine-producerende Escherichia coli (STEC) is een bacteriële zoönose met herkauwers als belangrijkste reservoir. Een Nederlandse attributiestudie liet zien dat ongeveer de helft van de patiënten kan worden toegeschreven aan runderen als reservoir en dat ongeveer een kwart van de infecties kan worden toegeschreven aan schapen en geiten.1 Varkens en pluimvee zijn kleinere reservoirs van STEC.
STEC-infecties zijn vaak het gevolg van de consumptie van besmet voedsel, maar transmissie via het milieu lijkt ook belangrijk.1,2 Daarnaast worden STEC-infecties regelmatig in het buitenland opgelopen en kan de ziekteverwekker van persoon op persoon worden overgedragen.3,4
Infecties met STEC kunnen asymptomatisch verlopen, maar kunnen ook leiden tot milde tot ernstige (bloederige) diarree.5 Gemiddeld ontwikkelt 2 tot 7% van de met STEC geïnfecteerde personen het hemolytisch uremisch syndroom (HUS), bestaande uit hemolytische anemie, trombocytopenie en acute nierinsufficiëntie. Acute STEC-infecties met minimaal diarree, braken of bloed in de ontlasting zijn meldingsplichtig onder de Wet publieke gezondheid (Wpg, zie 2.2) vanwege de ernst van de ziekte, vooral bij kleine kinderen en ouderen, en vanwege het risico op grootschalige uitbraken.
2.19.3 STEC bij mensen
In 2020 daalde het aantal gemelde patiënten met een STEC-infectie door (de maatregelen rondom) de coronapandemie naar 323. Sindsdien is het aantal meldingen gestegen, met in 2024 het hoogste aantal (n=645) sinds de aanscherping van de meldingscriteria in juli 2016.
Laboratoria kunnen STEC isolaten insturen naar het RIVM voor verdere typering. In de periode 2021-2023 kon aan 34-37 procent van de meldingen een isolaat gekoppeld worden. In 2024 werd het voor de laboratoria mogelijk om in plaats van een isolaat een STEC-positief fecesmonster in te sturen, als ze zelf niet kweekten. Van 304 van de 649 STEC-patiënten uit 2025 ontving het RIVM een STEC-positief fecesmonster of isolaat voor verdere typering met Whole Genome Sequencing (WGS). Dit komt neer op 47 procent (2024: 42%). Hiervan konden 124 niet gekweekt of bevestigd worden als STEC. Van de andere isolaten was:
- 59 STEC O157, vergelijkbaar met 2021 en 2024 (n=55 en 58), maar lager dan 2022 (n=71) en 2023 (n=70)
- 37 STEC O26, hoger dan in de periode 2021-2024 (n=19-28)
- 84 STEC overige non-O157, hoger dan 2021-2023 (n=68-80), maar lager dan 2024 (n=115)
Zie ook Figuur 2.19.1.
Binnen de 84 overige STEC non-O157 werden de volgende O-types het meeste gezien:
- STEC O103 (n=14)
- STEC O145 (n=13)
- STEC O146 (n=8)
In totaal werden er 32 verschillende O-types gevonden binnen de isolaten uit 2025.
Over de periode 2021-2025 waren de meest gevonden O-types:
- O157 (n=313)
- O26 (n=128)
- O103 (n=67)
- O145 (n=74)
- O146 (n=36)
- O63 (n=31)
- O111 (n=27)
2.19.3.1 Minder mannen dan vrouwen met STEC-infectie
Iets minder mannen (44%) dan vrouwen werden gediagnosticeerd met een STEC-infectie. Dit is vergelijkbaar met voorgaande jaren. In 2025 werden de meeste infecties van STEC O157 gezien in de leeftijdsgroepen 0-4 jaar (14%), en 10-19 & 20-29 jaar (elk 17%) en van STEC O26 in de leeftijdsgroepen 0-4 jaar (16%) en 10-19, 20-29 & 40-49 jaar (elk 14%). Ook bij infecties met overige STEC non-O157 was de leeftijdsgroep 0-4 jaar het grootst (20%), gevolgd door 30-39 jaar (17%). In de groep waarvoor geen isolaat beschikbaar was, is de leeftijdsgroep 20-29 jaar (18%) het meest aanwezig
2.19.3.2 Vooral bloed in de ontlasting bij STEC O157-infectie
Bloed in de ontlasting kwam tussen 2021 en 2025 voor bij:
- 66-83% van de STEC O157-infecties
- 25-68% van de STEC O26-infecties
- 29-50% van de overige STEC non-O157-infecties
- 34-38% van de infecties waarvan geen isolaat beschikbaar was.
2.19.3.3 Vooral opname in het ziekenhuis bij STEC O157- en O26-infecties
Opname in het ziekenhuis werd in 2025 (2021-2024) gemeld voor:
- 44% van de STEC O157-patiënten (24-40%)
- 37% van de STEC O26-patiënten (33-47%)
- 15% van de overige STEC non-O157-patiënten (21-30%)
- 26% van de patiënten waarvan geen isolaat of typering beschikbaar was (24-29%).
2.19.3.4 HUS na STEC-infectie
17 patiënten ontwikkelden HUS (2,6%), waarvan 10 kinderen in de leeftijd 1-9 jaar, 2 tieners en 5 volwassenen van 41 tot 87 jaar. Het aantal HUS patiënten is daarmee vergelijkbaar met de voorgaande jaren (11-25 gevallen; 1,8-5,2%).
De verdeling was als volgt:
- 4 HUS-patiënten hadden een STEC O157-infectie (2 kinderen, 1 tiener, 1 volwassene)
- 2 kinderen met HUS hadden een STEC O145-infectie
- 1 kind met HUS had een STEC O76-infectie
- Bij de overige HUS-patiënten was geen typering beschikbaar (5 kinderen, 1 tiener en 4 volwassenen).
2.19.3.5 Sterfte na STEC-infectie
Eén volwassene (50+ jaar) is overleden als gevolg van de STEC-infectie (0,2%), zonder beschikbaar isolaat voor verdere typering.
2.19.3.6 STEC-infecties mogelijk opgelopen in het buitenland
Het percentage patiënten dat meldde de infectie meest waarschijnlijk in het buitenland te hebben opgelopen (27%; 170/631), was in 2025 iets hoger dan in 2022-2024 (22-24%). De reis-gerelateerde infecties in 2025 werden opgelopen in Afrika (52%), Azië (22%), Europa (19%), en Noord- (1%) Midden- (2%) of Zuid-Amerika (4%) of in Oceanië (1%).
2.19.3.7 Geïdentificeerde clusters
Van de 180 beschikbare isolaten uit 2025, zaten 72 isolaten in een cluster (minimaal twee isolaten die maximaal zeven allelen van elkaar verschillen). In totaal werden 29 clusters (negen O-types) geïdentificeerd, met daarin ook twee niet-humane isolaten uit 2023 en 45 humane isolaten uit 2020-2024.
Figuur 2.19.1 STEC infecties bij de mens, Nederland, 2016-2025
2.19.4 STEC bij dieren en in voedsel
2.19.4.1 STEC bij vleesvarkens
In 2025 werd in het kader van het project surveillance landbouwhuisdieren van 100 vleesvarkensbedrijven mengmestmonsters onderzocht op de aanwezigheid van STEC. Op 72 (72%) van de bedrijven werd STEC isolaten aangetoond. Van 49 bedrijven kon het STEC isolaat worden getypeerd met WGS, in totaal zijn er 10 verschillende serotypen gevonden. De meest voorkomende serotypen waren:
- O8:H9 (n=21)
- O100:H30 (n=18)
Deze surveillance is een vervolg van het onderzoek uit 2024 waarin 114 vleesvarkensbedrijven werden onderzocht. De prevalentiegegevens en meest voorkomende serotypen zijn in beide jaren vergelijkbaar. Gezamenlijk omvatten de surveillance uit 2024 en 2025 in totaal 213 bedrijven, waarbij op 75% van de bedrijven STEC werd aangetoond.
Er werden geen STEC isolaten gevonden die behoren tot de ‘top-7’-serogroepen (O157:H7, O26:H11, O45:H2, O103:H2, O111:H8, O121:H19 en O145:H28). STEC isolaten die tot deze groepen behoren, worden als de belangrijkste pathogene enterohemorrhagische E. coli (EHEC) beschouwd, omdat deze het meest betrokken zijn bij ernstige gevallen en uitbraken.
2.19.4.2 STEC in voedsel algemeen
In opdracht van de (Nederlandse Voedsel- en Warenautoriteit) onderzocht WFSR in 2025 voedsel op de aanwezigheid van STEC binnen 27 monitoringsprojecten. Voor kant-en-klare producten geldt de eis dat in 25 gram product geen STEC aanwezig mag zijn (Warenwetbesluit bereiding en behandeling van levensmiddelen).
De bemonstering werd uitgevoerd in verschillende schakels van de voedselketen. In totaal werden 55 van de 2.764 voedselmonsters/-partijen (2,0%) positief bevonden voor STEC:
- 3,8% van de 1.220 rauwe, nog te verhitten vleesmonsters
- 1,5% van de 333 rauw te consumeren vleesproducten zoals filet americain, tartaar, droge worst
- 0,3% van de 1.211 niet-vleesmonsters zoals groenten, fruit, maaltijdsalades, deegwaren en alternatieve eiwitten. Alle positieve monsters waren afkomstig uit deegproducten.
Uit de positieve voedselmonsters werden 62 isolaten getypeerd, waarvan 34 met een uniek serotype. In meerdere partijen werden diverse STEC isolaten aangetroffen. Het merendeel van deze isolaten was afkomstig uit herten- en reevlees (n=27), gevolgd door lamsvlees (n=13) en kalfs-/rundvlees (n=13). De onderstaande drie serotypes werden het meest frequent aangetoond:
- O146:H21 (n=8, waarvan 4 uit lamsvlees en 3 uit herten- en reevlees en 1 uit varken). Dit serotype werd ook in voorgaande jaren het meest aangetoond.
- O128:H2 (n=7, waarvan 3 uit lamsvlees, 3 uit herten- en reevlees en 1 uit rund)
- O-groep niet gespecificeerd:H14 (n=4 uit hertenvlees)
Van de vijf meest aangetroffen serotypen bij STEC-patiënten (O157:H7, O26:H11, O103 (n=13 O103:H2 en 1x O103:H25), O145:H28 en O146 (n=5 O146:H28 en n=3 O146:H21)) werd O103:H2 in drie monsters aangetoond in voedsel en O146 in 11 monsters (n=8 O146:H21 en n=3 O146:H28) in voedsel.
2.19.4.3 Vlees en vleesproducten
Vooral rauw lamsvlees en vlees van hert, ree of zwijn waren relatief vaak positief.
Detailhandel
- In vers lamsvlees en lamsvleesbereidingen, werd in 8,9% van de 180 monsters een STEC-isolaat gevonden. Deze prevalentie is vergelijkbaar met eerdere jaren. Er werden 8 verschillende serotypen geïdentificeerd, waarvan O146:H21 het meest voorkwam (4/16).
- In vers varkens- en rundvlees werd STEC aangetoond in respectievelijk 0% (0/284) en 1,5% (4/268) van de monsters. In vers varkensvlees lag de prevalentie in voorgaande jaren ongeveer rond de 1%. Opvallend is dat in 2025 in deze monsters geen STEC is aangetoond. De prevalentie van STEC in vers rundvlees is vergelijkbaar met eerdere jaren. In vleesbereidingen zoals gehakt, hamburger en verse worst, werd 4 keer STEC aangetoond (2,2% van 179 monsters). Deze isolaten waren afkomstig van zowel rund als varken. In rauw te consumeren rundvlees bereidingen zoals filet americain, ossenworst en tartaar, werd in 2 van de 150 monsters (1,3%) STEC aangetoond: één isolaat in filet americain (1/71; O113:H4) en één in tartaar (1/29; O171:H2). Het serotype O171:H2 werd naast tartaar ook aangetoond in rundersoepvlees. De overige acht isolaten uit vers varkens- en rundvlees betroffen allemaal unieke typen.
- Net als in voorgaande jaren zijn ook niet-alledaagse diersoorten zoals eend, hert, fazant, en parelhoen gemonitord. In 40 monsters (17 afkomstig van eend en 15 van hert) werd 1 monster positief bevonden voor STEC (2,5%). Dit betrof wildzwijn poulet (1/3; 33,3%) met serotype O146:H28. Ter vergelijking: in 2023 en 2024 was respectievelijk 7,1% en 9,6% van de monsters in dit project positief voor STEC, waarbij STEC voornamelijk in hertenvlees werd aangetroffen.
- Overige vleesproducten die in 2025 werden bemonsterd waren paté (48 monsters), gedroogde rauwe ham (10 monsters) en droge worst (50 monsters). In deze productcategorieën werd in één monster droge worst STEC aangetoond (O100:H30).
Groothandel
- In vers kalfsvlees werd STEC aangetoond in 3,1% (6/192) van de monsters, in 2024 was dit 3,8% .
- In de rauw te consumeren rundvleesbereidingen uit de groothandel werd in 2 van de 75 monsters (2,7%) STEC aangetoond. Dit betrof twee monsters filet americain (2/33). Eén van deze isolaten werd getypeerd als O103:H2, het andere isolaat kon niet worden getypeerd.
- In vlees van minder gangbare diersoorten werd in 7 van de 34 monsters STEC aangetoond (20,6%). STEC werd aangetoond in 5 vleesmonsters afkomstig van hert (5/9; 55,6%), en 2 in vlees afkomstig van zwijn (2/4; 50,0%). Serotype O181:H14 werd in zowel zwijn- als hertenvlees aangetoond, de overige isolaten betroffen unieke serotypen.
Import
- Bij de import van rood vlees (rund) uit vijf verschillende landen werd in geen van de 22 onderzochte partijen STEC aangetoond. In de twee voorgaande jaren werd binnen dit project in 4,8% van de partijen STEC aangetoond.
- Bij de import van exotisch vlees werd een relatief hoog percentage STEC-positieve partijen aangetoond, namelijk 38,1% (8/21). Ter vergelijking: in 2024 bedroeg dit 40,9%. Het merendeel van de onderzochte partijen bestond hertenvlees (n=16), waarvan er 7 positief waren voor STEC (43,8%). Daarnaast werd één van de drie partijen reevlees positief bevonden (33,3%). Hertenvlees, afkomstig uit het Verenigd Koninkrijk en Nieuw-Zeeland, bleek het meest frequent besmet. Bij partijbemonstering (n=5) werd STEC vaak in meerdere submonsters binnen dezelfde partij aangetoond, waarbij verschillende serotypen voorkwamen. Zo werden in één partij reevlees vijf verschillende STEC-serotypen geïdentificeerd. De meest aangetroffen serotypen in herten- en reevlees waren O146:H21, O-groep niet gespecificeerd:H14 en O75:H8. In de twee onderzochte monsters exotisch vlees, eend en fazant, werd geen STEC aangetoond.
2.19.4.4 Voedingsmiddelen anders dan vlees
In 2025 zijn ook voedingsmiddelen anders dan vlees gemonitord op de aanwezigheid van STEC. In deegproducten uit de detailhandel (zoals bladerdeeg, pizzadeeg, flammkuchendeeg en croissantrollen) werd in 4 van de 50 onderzochte monsters (8,0%) STEC aangetoond. Het betrof drie monsters bladerdeeg (3/21) en één monster pizzadeeg (1/13). In twee bladerdeegmonsters werd serotype O103:H2 aangetroffen, de overige serotypen waren O38:H39 en O-groep niet gespecificeerd:H31. Dit is het eerste jaar waarin deze productgroep op de aanwezigheid van STEC is gemonitord.
In de overige niet-vleesgerelateerde monitoringsprojecten werd geen STEC aangetoond. Dit waren uit de detailhandel: verse groentenrauw te consumeren (338), roerbakmix groenten (178), bevroren groenten en fruit (136 monsters), maaltijdsalades (181 monsters), vers fruit (44 monsters), schil van fruit (47 monsters), bevroren zacht fruit (51 monsters) en alternatieve eiwitten (112 monsters). En uit de groothandel: kiemgroenten (11 partijen (n=5)), verse kruiden (59 partijen (n=5)) en levende schelpdieren (4 monsters).
2.19.4.5 Productie omgevingsmonsters van slagerijen
In 2025 zijn ook monsters genomen in de productieomgeving van slagerijen. Per slagerij werden met veegdoekjes drie verschillende plekken per bedrijf , zoals werkbanken, deuren of apparatuur, bemonsterd en onderzocht op de aanwezigheid van STEC. Van de 49 onderzochte slagerijen is op één werkbank (2,0%) STEC (O178:H19) aangetoond.
Literatuur:
- Mughini-Gras L., et al. Attribution of human infections with Shiga toxin-producing Escherichia coli (STEC) to livestock sources and identification of source-specific risk factors, The Netherlands (2010-2014). Zoonoses Public Health. 2018;65(1):e8-e22
- Friesema I.H., et al. Geographical association between livestock density and human Shiga toxin-producing Escherichia coli O157 infections. Epidemiol Infect. 2011;139(7):1081-7
- Augustin J.C., et al. Risk factors for sporadic infections caused by Shiga toxin-producing Escherichia coli: a systematic review and meta-analysis. Microbial Risk Analysis. 2021;17:100117
- Friesema I.H., et al., Risk factors for sporadic Shiga toxin-producing Escherichia coli O157 and non-O157 illness in The Netherlands, 2008-2012, using periodically surveyed controls. Epidemiol Infect. 2015;143(7):1360-7
- Smith J.L., et al. Shiga Toxin-Producing Escherichia coli. Advances in applied microbiology. 2014;86:145-97
2.20 Toxoplasmose
2.20.1 Hoofdpunten
- Er is beperkt inzicht in hoe vaak toxoplasmose voorkomt in Nederland. Er is geen meldingsplicht en er zijn geen jaarlijkse cijfers beschikbaar.
2.20.2 Wat is toxoplasmose?
Toxoplasmose is een infectie die wordt veroorzaakt door de parasiet Toxoplasma gondii. Het is wereldwijd een van de meest voorkomende zoönosen die door een parasiet wordt veroorzaakt.1,2 De kat is de eindgastheer van deze parasiet.
2.20.2.1 Transmissie van Toxoplasma
Als een kat voor het eerst besmet raakt, scheidt deze een paar weken lang miljoenen oöcysten (eitjes) uit met de ontlasting. Deze oöcysten rijpen een paar dagen in de omgeving en kunnen daarna andere dieren besmetten. Dit kunnen alle warmbloedige dieren zijn, waaronder landbouwhuisdieren zoals schaap, geit, varken en rund. Zij worden dan tussengastheer.
In de tussengastheer ontwikkelen zich cysten in verschillende weefsels, onder andere in de spieren, lever en hersenen. Knaagdieren, andere kleine zoogdieren en vogels vormen een bron van infectie voor de kat. Katten raken gemakkelijk besmet door het eten van prooidieren of vlees met weefselcysten.3 Jagen is de belangrijkste risicofactor voor infectie bij katten in Nederland.4
2.20.2.2 Transmissie bij mensen
Mensen kunnen besmet raken via het eten van vlees van besmette dieren, wanneer dit niet van tevoren is ingevroren of goed verhit. Ook kunnen mensen besmet raken als ze rijpe oöcysten binnenkrijgen, bijvoorbeeld tijdens het tuinieren (via besmette grond) of het eten van besmette groenten of fruit. Daarnaast kan er overdracht plaatsvinden via weefseltransplantaties. Als een vrouw tijdens haar zwangerschap voor het eerst een infectie met T. gondii oploopt, kan de parasiet via de placenta worden overgedragen op het ongeboren kind. Dit heet congenitale infectie.
2.20.3 Toxoplasma bij mensen
Bij de meeste mensen verloopt een infectie met T. gondii zonder symptomen of geeft het milde klachten, zoals moeheid, koorts en gezwollen lymfeknopen. Er kan ook een ontsteking van het vaat- en netvlies van het oog ontstaan, soms pas vele jaren later. Infectie tijdens de zwangerschap kan leiden tot een miskraam, of tot de geboorte van een kind met afwijkingen aan het zenuwstelsel of de ogen. Ook in deze gevallen kan het voorkomen dat oogafwijkingen pas na tientallen jaren zulke ernstige klachten geven, dat ze worden herkend. Daarnaast kunnen mensen met een sterk verzwakt immuunsysteem (bijvoorbeeld door ziekte of medicijnen), ernstige ziekteverschijnselen krijgen, zoals een longontsteking of hersenvliesontsteking.
T. gondii kan niet alleen in de spieren, maar ook in de hersenen aanwezig blijven. Daarom wordt er onderzoek gedaan naar mogelijke verbanden tussen T. gondii-infectie en verschillende psychiatrische ziekten of gedragsveranderingen. In deze onderzoeken wordt de seropositiviteit voor T. gondii in patiënten vergeleken met de seropositiviteit in gezonde controlepersonen. Deze onderzoeksmethode kan niet aantonen of het om een oorzakelijk verband gaat. De resultaten van deze studies lopen uiteen.5,6,7
2.20.3.1 Seroprevalentie in Nederland
In Nederland is de seroprevalentie (het deel van de personen met antilichamen tegen T. gondii op een bepaald moment) gebaseerd op een representatieve dwarsdoorsnede van de bevolking in de PIENTER-studies (Figuur 2.20.1). De seroprevalentie was 40,5% in 1995/1996, met een daling naar 26,0% in 2005/2006. De PIENTER-studie uit 2016-2017 liet zien dat de seroprevalentie weer iets was toegenomen (30,9%), met name in de oudere leeftijdsgroepen.8 Net als in de eerdere studies was er in 2016-2017 een verschil tussen de regio’s, met hogere seroprevalenties in het westen en lagere in het noordoosten en zuidoosten.
Figuur 2.20.1. Het percentage personen met antilichamen tegen Toxoplasma gondii per leeftijdscategorie in de Pienter-studies.
2.20.3.2 Geschatte incidentie en preventie
Toxoplasmose is in Nederland geen meldingsplichtige ziekte volgens de Wet publieke gezondheid (Wpg) (zie paragraaf 2.2) en is niet opgenomen in het screeningsprogramma voor zwangeren. Verschillende soorten laboratoria voeren de diagnostiek uit op verzoek van verschillende soorten aanvragers. Daardoor bestaat geen goed inzicht in het aantal gevallen per jaar en de ontwikkelingen daarin. Met een geschatte incidentie van congenitale toxoplasmose van 2 kinderen per 1.000 levendgeborenen per jaar, en een ziektelast van 1.800 DALY’s per jaar, is toxoplasmose een belangrijke zoönotische en voedsel-overdraagbare infectie in Nederland.9,10 In Nederland is preventie van toxoplasmose vooral gebaseerd op voorlichting van risicogroepen, zoals zwangeren en immuungecompromitteerden, via de verloskundige of behandelaar. Voor de algemene bevolking is informatie beschikbaar op de websites van RIVM en Voedingscentrum.
2.20.4 Toxoplasma bij dieren
Bij dieren verloopt een T. gondii-infectie vaak zonder symptomen, hoewel (congenitale) toxoplasmose met neurologische en oculaire verschijnselen of abortus kan optreden. Bij kleine herkauwers is toxoplasmose een belangrijke oorzaak van abortus.12 Er is geen monitoringssysteem voor landbouwhuisdieren in Nederland, maar wel een meldingsplicht voor dierenartsen en onderzoeksinstellingen. De (Gezondheidsdienst voor Dieren) rapporteert Toxoplasma-gegevens uit de diagnostiek met betrekking tot abortus en doodgeboorte bij kleine herkauwers in de jaarrapportages Monitoring Diergezondheid. De gegevens in Tabel 2.20.1 komen uit onderzoeksprojecten of vanuit klinische of exportdiagnostiek.
Tabel 2.20.1 Toxoplasma in dieren (2021-2025)
| Diersoort | Positief/totaal geteste monsters (% positief) | ||||
|---|---|---|---|---|---|
| Jaar | 2021 | 2022 | 2023 | 2024 | 2025 |
| Geiten | 1/58 (2%)a; 1/1 (100%)c | 0/58 (0%)a | 11/64 (17%) a | 1/112 (0,9%)a; 3/5 (60%)c | 1/34 (3%)a |
| Schapen | 5/129 (4%)a | 13/134 (10%)a | 15/111 (14%)a | 18/119 (15%)a | 6/59 (10%)a |
| Schapen | 6/23 (26%)c | 15/92 (16%)c | 0/2 (0%)c | - | 0/5 (0%)c |
| Runderen | - | - | 0/3 (0%)c | 0/1 (0%)c | - |
| Honden | 105/339 (31%)b | 116/293 (40%)b | 65/259 (25%)b | 46/277 (17%)b | 34/233 (15%)b |
| Katten | 50/145 (34%)b | 42/118 (36%)b | 23/105 (22%)b | 25/123 (20%)b | 22/129 (17%)b |
| Ratten | 2/267 (1%)d | - | - | - | - |
| Muizen | 0/99 (0%)d | - | - | - | - |
T. gondii-infectie geeft geen zichtbare afwijkingen bij consumptiedieren. Er kan dus niet op worden gecontroleerd bij de klassieke vleeskeuring in de slachthuizen op basis van visuele inspectie. Ook serologische diagnostiek blijkt onvoldoende betrouwbaar om besmetting van productiedieren en vlees uit te sluiten: het is mogelijk dat dieren zonder antilichamen toch cysten in het vlees hebben. Voor kleine herkauwers, varkens en kippen kan serologie wel gebruikt worden om te bepalen welke bedrijven een hoog besmettingsniveau hebben. Bij rund en paard is de overeenkomst tussen serologische resultaten en de detectie van cysten in het vlees zo slecht, dat serologie ook niet geschikt is voor het opsporen van positieve bedrijven.13,14,15 Uit onderzoek in 2007 bleek de seroprevalentie bij schapen ongeveer 28%.16 Bij vleesvarkens varieerde de seroprevalentie van 2012-2016 van 1,4% tot 2,8%.17
2.20.5 Bronattributie
Om T. gondii-infecties te kunnen voorkomen is het belangrijk om te weten wat de belangrijkste bronnen van infectie zijn. Om hier inzicht in te krijgen heeft het RIVM in samenwerking met medisch-microbiologische laboratoria van 2016 tot 2021 onderzoek gedaan onder 44 patiënten en 43 controlepersonen. De risicofactoren voor het krijgen van toxoplasmose bleken consumptie van wild en soms of nooit handenwassen voor het bereiden van voedsel.11
Daarnaast berekent het RIVM met kwantitatieve risicobeoordelingsmodellen de mogelijke bijdrage van verschillende besmettingsroutes. Daaruit blijkt dat binnen de vleesgerelateerde infecties in Nederland vooral de rauw te consumeren vleesproducten een groot aandeel hebben in humane T. gondii-infecties.18,19,20 Rauwe vleesproducten bevatten echter meestal toevoegingen, zoals zout, lactaat en acetaat, die de parasiet in het vlees kunnen (af)doden. De effectiviteit hiervan is niet voor alle methoden van zouten duidelijk, maar heeft veel invloed op het geschatte risico voor deze vleesproducten in de bronattributiestudie.19,20 Met een in vitro-methode om de overleving van T. gondii in vlees te bepalen,21,22 wordt onderzocht in welke mate die toevoegingen leiden tot inactivatie van T. gondii. De resultaten hiervan zullen worden meegenomen in de bronattributiemodellen. Mogelijk zorgen de toevoegingen in het vlees voor voldoende beheersing van het risico op infectie. Een andere manier om T. gondii te doden, is het vooraf invriezen van het vlees dat wordt gebruikt voor de bereiding van rauwe vleesproducten. Deze optie blijkt netto baten op te leveren voor de samenleving.23
Naast onvoldoende verhit vlees vormt blootstelling aan oöcysten via grond of besmette groenten en fruit een belangrijke bron van infectie voor de mens. In eerder onderzoek is geschat dat het aantal infecties via grond hoger is dan het aantal infecties via vlees, maar door onzekerheden in de risicobeoordelingsmodellen zijn deze getallen niet goed te vergelijken.24 Ook voor groente en fruit is dit lastig. Zo bleek uit Europees onderzoek (2020-2022) in 4,1% van de zakjes voorgewassen sla uit tien landen Toxoplasma-DNA te zitten.25 Dat betekent niet meteen dat hier ook besmettelijke oöcysten in zaten, maar wel dat rauwe groente en misschien fruit ook een bron van Toxoplasma-infectie kunnen zijn.
Literatuur:
- Bouwknegt, M., et al., De ziektelast van voedselgerelateerde infecties in Nederland, 2009-2012. Infectieziektenbulletin, 2015; 26(1):10-13
- Torgerson, P.R., et al., The global burden of foodborne parasitic diseases: an update. Trends Parasitol, 2014; 30(1):20-6
- Dubey, J.P., Comparative infectivity of oocysts and bradyzoites of Toxoplasma gondii for intermediate (mice) and definitive (cats) hosts. Vet Parasitol. 2006.;140(1-2):69-75
- Opsteegh, M., et al., Seroprevalence and risk factors for Toxoplasma gondii infection in domestic cats in The Netherlands. Prev Vet Med. 2012; 104(3-4):317-26
- Sutterland, A. L., et l., Beyond the association. Toxoplasma gondii in schizophrenia, bipolar disorder, and addiction: systematic review and meta-analysis. Acta Psychiatrica Scandinavica. 2015; 132(3):161-179
- Sutterland, A. L., et al., Driving us mad: the association of Toxoplasma gondii with suicide attempts and traffic accidents–a systematic review and meta-analysis. Psychological medicine. 2019; 49(10):1608-1623
- de Bles, N. J., et al., Toxoplasma gondii seropositivity in patients with depressive and anxiety disorders. Brain, Behavior, & Immunity-Health. 2021; 11:100197
- Van den Berg, O. E., et al., Seroprevalence of Toxoplasma gondii and associated risk factors for infection in the Netherlands: third cross-sectional national study. Epidemiology and Infection. 2023; 151: e136
- Kortbeek, L.M., et al., Congenital toxoplasmosis and DALYs in the Netherlands. Mem Inst Oswaldo Cruz. 2009; 104(2): 370-3
- Friesema, I., et al., Voedselgerelateerde en overige enterale infecties in Nederland. Jaarrapportage 2024. 2025; RIVM-rapport 2025-0098
- Friesema, I.H.M., et al., Risk factors for acute toxoplasmosis in the Netherlands. Epidemiol Infect. 2023; 151: e95
- van den Brom, R., et al., Abortion in small ruminants in the Netherlands between 2006 and 2011. Tijdschr Diergeneeskd. 2012; 137(7): 450-7.
- Opsteegh, M., et al., Relationship between seroprevalence in the main livestock species and presence of Toxoplasma gondii in meat (GP/EFSA/ BIOHAZ/2013/01). An extensive literature review. Final report. 2016, EFSA.
- Opsteegh, M., et al., Experimental studies on Toxoplasma gondii in the main livestock species (GP/EFSA/ BIOHAZ/2013/01) Final report. 2016, EFSA.
- Opsteegh, M., et al., The relationship between the presence of antibodies and direct detection of Toxoplasma gondii in slaughtered calves and cattle in four European countries. Int J Parasitol. 2019; 49(7):515-522.
- Opsteegh, M., et al., Evaluation of ELISA test characteristics and estimation of Toxoplasma gondii seroprevalence in Dutch sheep using mixture models. Prev. Vet. Med. 2010: 96(3-4): 232-240
- Swanenburg, M., et al., Large-scale serological screening of slaughter pigs for Toxoplasma gondii infections in The Netherlands during five years (2012–2016): Trends in seroprevalence over years, seasons, regions and farming systems. Veterinary Parasitology. 2019; 2:100017.
- Opsteegh, M., et al., A quantitative microbial risk assessment for meatborne Toxoplasma gondii infection in The Netherlands. Int J Food Microbiol. 2011; 150(2-3):103-14.
- Deng, H., et al., The effect of salting on Toxoplasma gondii viability evaluated and implemented in a quantitative risk assessment of meatborne human infection. International journal of food microbiology. 2020; 314:108380.
- Swart, A.N., Opsteegh, M. Toxoplasma infections through meat in the Netherlands. Risk assessment update. 2025; RIVM-rapport 2025-0013[
- Opsteegh, M., et al., Methods to assess the effect of meat processing on viability of Toxoplasma gondii: towards replacement of mouse bioassay by in vitro testing. International journal for parasitology. 2020; 50(5):357-369.
- Opsteegh M., et al., In vitro assay to determine inactivation of Toxoplasma gondii in meat samples. Int J Food Microbiol. 2024; 416:110643
2.21 Trichinellose
2.21.1 Hoofdpunten
- In 2025 is er geen Trichinella gevonden bij dieren.
- In 2025 is er van achttien mensen serum onderzocht op antistoffen tegen Trichinella. Deze materialen testten allemaal negatief.
2.21.2 Achtergrond
Trichinellose is een zoönose veroorzaakt door een parasiet, namelijk door rondwormen van het geslacht Trichinella. Er zijn dertien verschillende soorten/genotypen van Trichinella bekend.1,2 Van nature komen de rondwormen voor in wilde en gehouden dieren die vleeseter of alleseter zijn.3 Waarschijnlijk kunnen alle Trichinella-soorten tot ziekte leiden bij de mens, maar Trichinella spiralis komt in Europa bij mensen het meeste voor. Deze soort komt wereldwijd voor, vooral bij varkens. In Europa komen ook T. pseudospiralis, T. britovi en T. nativa voor, vooral bij wilde dieren.
2.21.2.1 Levenscyclus van Trichinella
Als een dier of mens vlees eet dat besmet is met de larven van de Trichinella-rondworm, komen de larven in de dunne darm vrij. Ze kunnen de darmwand binnendringen en zich daar ontwikkelen tot volwassen rondwormen. Na bevruchting produceren de vrouwtjes levende larven in de darm. Deze larven gaan door de darmwand heen en verplaatsen zich via lymfe en de bloedbaan naar de spiercellen van hun gastheer. De larven veranderen de binnengedrongen cel in een zogenaamde ‘nurse-cel’. Sommige Trichinella-soorten kapselen zich in deze fase in. In de spieren van de gastheer kunnen de larven zo jarenlang overleven, maar zich niet verder ontwikkelen. Pas als de gastheer wordt opgegeten door een vleeseter of alleseter, kan de cyclus van Trichinella doorgaan. Als de gastheer sterft, kunnen Trichinella-spierlarven in het afstervende spierweefsel nog lange tijd in leven blijven.4
2.21.2.2 Infectie bij de mens
Mensen kunnen besmet raken met Trichinella-parasieten door het eten van rauw of onvoldoende verhit vlees, meestal varkensvlees of vlees van wilde zwijnen, maar bijvoorbeeld ook paardenvlees. De verschijnselen zijn afhankelijk van de Trichinella-soort, de hoeveelheid opgenomen larven en in welke fase de larven zich bevinden (in de darm, rondtrekkend of in de spieren).5 Daarnaast hangt de ernst ook samen met waar de larven zich bevinden: of ze bijvoorbeeld ook de hersenen of het hart zijn binnengedrongen. Trichinellose kan zeer ernstig en heel soms zelfs dodelijk verlopen.
Trichinellose komt af en toe voor als op zichzelf staand geval bij een enkele persoon. Vaker gaat het om voedselgerelateerde uitbraken met meerdere personen. De meest recente grote uitbraak in Europa was in december 2019 - januari 2020 in Noordwest-Italië met 79 gevallen.6,7 Deze uitbraak kon worden herleid tot consumptie van rauwe vleesproducten van één wild zwijn dat met T. britovi besmet was. Ook vanuit andere Europese landen worden regelmatig uitbraken aan ECDC gerapporteerd.
2.21.3 Trichinella bij dieren
Consumptiedieren die gevoelig zijn voor Trichinella moeten volgens (Europese unie)-wetgeving worden onderzocht (zie Tabel 2.21.1). Het risico op Trichinella is echter zeer klein wanneer varkens binnen worden gehouden. Daarom is in 2015 de EU-wetgeving zo aangepast dat slachtvarkens die gecontroleerd onder wettelijk vastgestelde biosecurity-condities (controlled housing) gehouden worden, niet meer getest hoeven te worden.8
Toch worden in Nederland alle varkens, paarden en wilde zwijnen tijdens de slachtfase nog steeds gecontroleerd op Trichinella. Dit wordt gedaan door 1 gram (bij een vleesvarken) tot 5 gram (bij een paard of wild zwijn) spiervlees van een predilectieplaats van elk karkas na kunstmatige vertering microscopisch te onderzoeken op Trichinella. Hoewel het risico op een infectie bij ongeveer 95% van de Nederlandse varkens zeer laag is, omdat deze onder controlled housing-systemen worden gehouden, bestaat er een risico voor de buitengehouden varkens en wilde zwijnen, omdat Trichinella endemisch voorkomt in gevoelige wilde vleeseters en alleseters (wildcyclus).9
Het (Rijksinstituut voor Volksgezondheid en Milieu)-CIb heeft een referentielaboratorium voor voedseloverdraagbare en zoönotische parasieten en borgt de kwaliteit van het routinematige onderzoek van Trichinella bij slachtdieren. Daarnaast doet het RIVM onderzoek naar het voorkomen van Trichinella bij wild. In 2025 zijn 14.124.017 slachtvarkens, 3.030 slachtpaarden en 3.267 wilde zwijnen routinematig onderzocht op Trichinella. Geen van de dieren is positief bevonden.
In 2025 zijn bij het RIVM 26 wolven, 102 vossen, 14 wasberen, 8 wasbeerhonden en 7 bevers (verzameld in de periode 2024–2025, en één wolf uit 2021) onderzocht. Bij geen van deze dieren zijn Trichinella-larven gevonden. In 2024 werd bij één wasbeerhond uit 2023 Trichinella britovi aangetoond met 0,17 larven per gram (Tabel 2.21.1).
Tabel 2.21.1 Trichinella in dieren
| Dieren | Positief/getest | ||||
|---|---|---|---|---|---|
| 2021 | 2022 | 2023 | 2024 | 2025 | |
| Varkens slachthuisa | 0/16.349.297 | 0/13.310.748 | 0/15.052.038 | 0/14.674.833 | 0/14.124.017 |
| Paarden/pony'sa | 0/1.777 | 0/1.984 | 0/2.487 | 0/2.968 | 0/3.030 |
| Wilde zwijnena | 0/4.231 | 0/2.718 | 0/3.343 | 0/2.296 | 0/3.267 |
| Wasbeerhondenb | - | - | 0/21 | 1/29 | 0/8 |
| Beversb | - | - | - | 0/29 | 0/7 |
| Vossenb | - | - | - | 0/33 | 0/102 |
| Wolvenb | - | - | 0/5 | 0/18 | 0/26 |
| Wasberenb | - | - | 0/3 | 0/87 | 0/14 |
2.21.4 Trichinellose bij mensen
De diagnostiek van Trichinella berust vooral op serologie. De serologie wordt in Nederland alleen uitgevoerd door het RIVM. De sera worden getest in een immunoblot. Bij bijzondere resultaten overlegt het RIVM met het referentiecentrum in Rome (EU Reference Laboratory for Parasites, ISS). In 2025 zijn sera van achttien patiënten getest. Deze sera testten allemaal negatief. In de afgelopen tien jaar (2016-2025) werd in Nederland slechts één patiënt met trichinellose gemeld. Dit was in 2022. Deze patiënt had eosinofilie en oedeem in het oog, waarbij Trichinella-antistoffen konden worden aangetoond. De besmetting heeft waarschijnlijk plaatsgevonden in Eritrea. De mogelijke bron is onbekend.
Literatuur:
- Zarlenga, D., Thompson, P., Pozio, E., Trichinella species and genotypes. Research in Veterinary Science. 2020; 133:289-296.
- Malone, C.J., Oksanen, A., Mukaratirwa, S., Sharma, R., Jenkins, E., From wildlife to humans: The global distribution of Trichinella species and genotypes in wildlife and wildlife-associated human trichinellosis. International Journal for Parasitology: Parasites and Wildlife. 2024; 24.
- Pozio, E., The broad spectrum of Trichinella hosts: from cold- to warm-blooded animals Vet Parasitol. 2005; 132(1-2):3-11.
- Jovic, S., et al., Infectivity of Trichinella spiralis larvae in pork buried in the ground Parasite. 2001; 8(2 Suppl):S213-5.
- RIVM, LCI-Richtlijn Trichinellose 2010, RIVM, Rijksinstituut voor Volksgezondheid en Milieu: Bilthoven.
- Stroffolini, G., et al., Trichinella britovi outbreak in Piedmont, North-West Italy, 2019–2020: Clinical and epidemiological insights in the one health perspective Travel Med Infect Di. 2022; 47: 102308
- European Centre for Disease Prevention and Control. Trichinellosis. In: ECDC. Annual Epidemiological Report for 2020. Stockholm: ECDC; 2022.
- European Union. Uitvoeringsverordening (EU) 2015/1375 E. Publicatieblad van de Europese Unie, 2015.
- Franssen F., et al., Assessing the risk of human trichinellosis from pigs kept under controlled and non-controlled housing in Europe. Food Waterborne Parasitol. 2018; 19(10):14-22.
2.22 Tuberculose
2.22.1 Hoofdpunten
- In 2025 zijn er vijftien meldingen van tuberculose veroorzaakt door Mycobacterium bovis, dit aantal is veel hoger dan in eerdere jaren. Twaalf patiënten waren afkomstig uit het buitenland (zeven uit Marokko, drie uit Syrië en twee uit andere landen).
- In 2025 zijn vijftien monsters van runderen, katten en een wild zwijn onderzocht, er is in deze dieren geen M. bovis aangetoond.
In Nederland wordt tuberculose bij de mens in circa 98% van de gevallen veroorzaakt door Mycobacterium tuberculosis, in 0,3-0,8% van de gevallen door M. africanum (de transmissieroute is voor dit subspecies vergelijkbaar met M. tuberculosis) en in 0,7-1,7% door M. bovis. Van deze drie subspecies is alleen M. bovis een zoönotische verwekker. Andere zoönotische Mycobacterium tuberculosis complex (sub) species die in uitzonderlijke gevallen tuberculose veroorzaken zijn bijvoorbeeld M. caprae, M. microti, M. orygis en M. pinnipedii, maar deze spelen in Nederland bij mensen maar af en toe een rol.
2.22.2 Mycobacterium bovis-infecties bij de mens
Verspreiding van M. tuberculosis is vooral via de lucht, terwijl overdracht van M. bovis naar de mens meestal via gecontamineerde, niet-gepasteuriseerde melk of rauwe kaas plaatsvindt (enterale route). Zelden worden mensen door dieren met M. bovis besmet via de lucht, bijvoorbeeld door aerosolvorming bij de slacht. Longtuberculose die door M. bovis veroorzaakt wordt, komt bij de mens dan ook veel minder vaak voor. Transmissie vanuit dergelijke cases wordt vrijwel nooit waargenomen in de structurele DNA-fingerprintsurveillance.
In 2025 zijn er vijftien meldingen gedaan van tuberculose veroorzaakt door M. bovis. Zeven patiënten (47%) waren afkomstig uit Marokko, drie patiënten (20%) uit Syrië, twee uit andere landen (13%) en drie patiënten (20%) waren geboren in Nederland. Van de vijftien hadden twaalf tuberculose buiten de longen (extrapulmonale tuberculose), twee hadden longtuberculose (pulmonale tuberculose) en één had een combinatie van beiden.
In de periode 2016-2025 zijn in Nederland in totaal 86 meldingen gedaan van tuberculose veroorzaakt door M. bovis. In 2025 werden er vijftien patiënten gemeld, dit aantal is veel hoger dan in 2023 (7) en 2024 (8). Gezien de kleine aantallen patiënten per jaar wordt er vanuit gegaan dat dit om normale variatie gaat. In de periode 2016-2022 varieerde het aantal tussen vijf en dertien. Figuur 2.22.1 geeft een overzicht per jaar. Van 86 patiënten waren er 16 (19%) geboren in Nederland en 70 (81%) in het buitenland, van wie 35 in Marokko. De leeftijdsdistributie van patiënten met een door M. bovis veroorzaakte tuberculose verschilt sterk naar land van herkomst; 44% (7 van 16) van de in Nederland geboren patiënten was ouder dan 65 jaar (endogene reactivatie), terwijl slechts 13% (9 van 70) van de in het buitenland geboren patiënten tot die leeftijdscategorie behoorde (Figuur 2.22.2). Aangezien M. bovis patiënten die buiten Nederland zijn geboren over het algemeen jonger zijn, moeten er nog veel bronnen van infectie aanwezig zijn in het land van herkomst. In de periode 2016-2025 had 20% van de patiënten een longtuberculose en 80% extrapulmonale tuberculose.
In 2025 werd een M. bovis cluster geïdentificeerd door het (Rijksinstituut voor Volksgezondheid en Milieu) referentielaboratorium op basis van WGS. De 3 isolaten behorende tot dit cluster zijn gemeld aan de desbetreffende (Gemeentelijke gezondheidsdiensten). De 3 patiënten hebben een vorm van extrapulmonale tuberculose; de infecties lijken oraal verworven in provincie Taourirt, Marokko. Het cluster is gerelateerd aan isolaten die in Spanje zijn geïdentificeerd. Het cluster wordt internationaal gemonitord via het EpiPulse-systeem van (European Centre for Disease Prevention and Control).
Figuur 2.22.1 Tuberculosemeldingen M. bovis per jaar, 2016-2025 (Bron: Osiris-NTR, RIVM-Cib)
Figuur 2.22.2 Leeftijdsverdeling M. bovis infecties van 2016-2025
2.22.2 Mycobacterium bovis-infecties bij dieren
De tuberculosebewaking bij landbouwhuisdieren in Nederland is vooral gebaseerd op de slachthuisbewaking (keuring na het slachten). Daarnaast vindt onderzoek door middel van tuberculinatie plaats bij export van dieren naar derde landen (landen buiten de (Europese unie)), bij fokdieren voor kunstmatige inseminatie-waardigheid op spermawinstations en bij klinische verdenkingen in met name dierentuinen. Na signalering van besmette bedrijven in het buitenland, vindt bij de dieren die zijn geïmporteerd in Nederland vanuit deze buitenlandse besmette bedrijven, tuberculinatie plaats. Deze dieren zijn geïmporteerd vóórdat het buitenlandse bedrijf van oorsprong als besmet werd aangemerkt
In 2025 werden in totaal elf inzendingen onderzocht op rundertuberculose door middel van bacteriële isolatie en/of PCR in het kader van slachthuisbevindingen, positieve tuberculinaties, verdachte sectiebeelden /organen, diagnostiek en/of traceringen van runderen afkomstig uit het buitenland, waarbij op het bedrijf van herkomst tuberculose is vastgesteld. Deze monsters waren alle afkomstig van runderen. In deze monsters zijn geen tuberculose verwekkers aangetoond.
Er is één monster van een wild zwijn onderzocht door middel van histologie. In dit monster zijn geen tuberculose specifieke afwijkingen gevonden.
Er zijn 117 overige inzendingen ontvangen (van diverse (dierentuin) dieren) voor isolatie, pathologisch en/of PCR-onderzoek op de aanwezigheid van mycobacteriën. Van de 117 ingezonden materialen werden 114 negatief bevonden voor PCR gebaseerde detectie van tuberculose-complex bacteriën. In drie van de monsters is M. bovis aangetoond (kat), in 26 monsters zijn Mycobacterium avium bacteriën aangetroffen.
2.23 Tularemie
2.23.1 Hoofdpunten
- De diagnose tularemie is gesteld bij zes patiënten met een eerste ziektedag in 2025.
- De meest waarschijnlijke besmettingsroutes waren een insectenbeet of -steek (3), insectenbeet of blootstelling aan aerosolen (1), opspattend oppervlaktewater (1) en onduidelijk (1).
- In 2025 is Francisella tularensis-infectie aangetoond bij twee hazen (Lepus europaeus). De diagnose tularemie is gesteld bij twee patiënten met een eerste ziektedag in 2024. Eén patiënt werd opgenomen in het ziekenhuis na mogelijke blootstelling aan oppervlaktewater of insectenbeten in Nederland of Duitsland. Bij de andere patiënt bleef de bron van infectie onbekend.
- In 2024 is Francisella tularensis-infectie aangetoond bij twee hazen (Lepus europaeus).
2.23.2 Achtergrondinformatie
Tularemie (hazenpest) wordt veroorzaakt door de bacterie Francisella tularensis. In Europa komt vrijwel alleen subspecies holarctica voor. Besmettingen kunnen voorkomen bij zeer veel diersoorten, waaronder zoogdieren, vogels en invertebraten. Vooral haasachtigen en knaagdieren zijn gevoelig voor infecties en spelen een belangrijke rol bij humane besmettingen. Verschillende transmissieroutes van F. tularensis naar de mens zijn bekend: via steken of bijten door arthropoden (onder andere teken, dazen, muggen), via contact met besmette dieren bij een beschadigde huid, via ingestie van besmet (oppervlakte)water of voedsel, of door inhalatie van gecontamineerd stof of aerosolen. Voor zover bekend gaat de ziekte niet over van mens op mens. De infectieroute bepaalt mede hoe de ziekte zich uit. Bij besmettingen via huidlesies worden vaak ulcera en regionale lymfadenopathie gezien. Orale besmetting kan resulteren in buikklachten/diarree en in orofaryngeale tularemie. Bij besmetting via inademing kan een longontsteking optreden. Andere mogelijke verschijnselen zijn koorts, hoofdpijn, spierpijn en keelpijn. Tularemie is sinds november 2016 een humane meldingsplichtige ziekte.
Na decennia van afwezigheid in Nederland wordt vanaf 2011 bij patiënten weer incidenteel tularemie vastgesteld. In de afgelopen tien jaar (2016-2025) zijn in totaal 39 gevallen van tularemie bij mensen gemeld (1-9 per jaar), waarvan acht patiënten vermoedelijk de besmetting in het buitenland hebben opgelopen (Figuur 2.23.1). De infecties komen verspreid over Nederland voor, waarbij het tot nu toe vooral om individuele, op zichzelf staande gevallen gaat. Een uitzondering hierop is een gezinscluster in 2023, waarbij meerdere gezinsleden tijdens een verblijf in Zweden besmet raakten via een waterbron. Bij de meerderheid van de Nederlandse gevallen kon de waarschijnlijke besmettingsroute worden achterhaald. Dat waren een beet van arthropoden, contact met (of consumptie van) een dode haas, een muizenbeet, inhalatie van besmette aerosolen tijdens hovenierswerkzaamheden, en contact met besmet water of modder, zoals tijdens deelname aan een modderrace.1
Figuur 2.23.1 Aantal gemelde patiënten met tularemie, naar binnenlandse of buitenlandse besmetting, 2016-2025
2.23.3 Tularemie bij mensen
De diagnose tularemie is gesteld bij zes patiënten met een eerste ziektedag in 2025. Het betrof drie vrouwen, waaronder één tiener en twee vrouwen in de leeftijd van 40-64 jaar, en drie mannen, van wie één in de leeftijd 40-64 jaar en twee van 65 jaar of ouder.
Vier patiënten ontwikkelden een huidulcus, meestal in combinatie met regionale lymfadenopathie en andere klachten. Eén patiënt presenteerde zich met regionale lymfadenopathie zonder zichtbaar huidulcus, en een andere patiënt presenteerde zich met een longontsteking, passend bij een pulmonale vorm van tularemie. Drie patiënten werden ten gevolge van de infectie in het ziekenhuis opgenomen.
De diagnose werd bij de meeste patiënten bevestigd met PCR en/of kweek. Bij drie patiënten was een PCR positief en bij twee patiënten was een kweek van wond- of pusmateriaal positief. Bij de patiënt met pulmonale tularemie werd de diagnose serologisch bevestigd met positieve IgM en IgG bij ELISA en IFA.
Bij drie patiënten was een insectenbeet of -steek de meest waarschijnlijke besmettingsroute, twee van hen raakten vermoedelijk besmet in Midden-Nederland en één in Zuid-Nederland. Bij één patiënt was zowel besmetting via een insectenbeet als blootstelling aan aerosolen of waterdamp in een bos- en waterrijk gebied met hazen een mogelijke besmettingsroute, deze besmetting vond vermoedelijk plaats in Midden-Nederland. De patiënt met pulmonale tularemie raakte mogelijk besmet door blootstelling aan opspattend oppervlaktewater tijdens werkzaamheden in de groenvoorziening in Noord-Nederland. Bij één patiënt kon geen duidelijke besmettingsroute worden vastgesteld, deze infectie is vermoedelijk in Midden-Nederland opgelopen.
2.23.4 Tularemie bij dieren
In 2025 is Francisella tularensis-infectie in de generieke surveillance door het DWHC aangetoond bij twee hazen (Lepus europaeus).
De hazen waren afkomstig uit twee provincies: Limburg (april) en Overijssel (juli). De haas uit Limburg was uit een gemeente waar de ziekte niet eerder was vastgesteld.
De infectie werd bij beide dieren vastgesteld door een PCR-test bij het Veterinair Microbiologisch Diagnostisch Centrum (VMDC) en vervolgens bevestigd door Wageningen Bioveterinary Research (WBVR).
In 2025 zijn bij het (Rijksinstituut voor Volksgezondheid en Milieu) 7 muskusratten getest d.m.v. een PCR test. Zes muskusratten waren afkomstig uit Utrecht en één muskusrat uit Overijssel. Allemaal waren ze verzameld in 2024. Alle muskusratten testten negatief.
Er zijn sinds 2011 t/m 2025 in totaal 66 hazen, 2 bevers en 1 rode eekhoorn gediagnosticeerd met tularemie.
2.23.5 F. tularensis in water en sediment
In 2025 is de monitoring van F. tularensis DNA in oppervlaktewater van één locatie in de provincie Overijssel en één locatie in de provincie Utrecht, gestart in 2023, afgerond. Op beide locaties zijn in januari zes watermonsters en zes sedimentmonsters verzameld. F. tularensis DNA kon worden aangetoond in drie watermonsters en één sedimentmonster uit Overijssel en in zes watermonsters en vier sedimentmonsters uit Utrecht. Dit bevestigt het beeld dat F. tularensis langdurig op een locatie te detecteren blijft.
2.23.6 Clades van F. tularensis
In Europa wordt tularemie vrijwel uitsluitend veroorzaakt door F. tularensis subspecies holarctica, waarvan op basis van fylogenetisch onderzoek een aantal basale clades kunnen worden onderscheiden, met een duidelijke geografische verspreiding. De belangrijkste clades zijn de zogenoemde B.6, die voornamelijk wordt gevonden in westelijke en centrale delen van Europa, terwijl clade B.12 in Centraal- en Oost-Europa voorkomt. Beide typen komen ook in Nederland voor.2 Op de humane en dierlijke samples beschikbaar uit 2025 is geen genotypering uitgevoerd .
Literatuur:
- Rijks J.M., et al., Tularemia Transmission to Humans, the Netherlands, 2011-2021 Emerg Infect Dis. 2022; 28(4):883-885
- Koene, M., et al., Phylogeographic distribution of human and hare Francisella tularensis subsp. holarctica strains in the Netherlands and its pathology in European brown hares (Lepus europaeus) Front Cell Infect Microbiol. 2019; 9:11
2.24 Voedselgerelateerde uitbraken
2.24.1 Hoofdpunten
- Het totaal aantal gemelde uitbraken was in 2025 (n=1.142), na een daling in 2023, vergelijkbaar met 2022 en 2024 (1.173-1.179 uitbraken). Het aantal daarbij behorende ziektegevallen bij (Nederlandse Voedsel- en Warenautoriteit) en (Gemeentelijke gezondheidsdiensten) (4.279 zieken) is wel lager dan in 2022 (4.505 zieken) en 2024 (5.405 zieken).
- In 31 uitbraken (2,7%) was een ziekteverwekker bekend, met als meest gemeld Salmonella (10 uitbraken + een uitbraak waarbij ook sapovirus werd gedetecteerd) en norovirus (7 uitbraken), gevolgd door Campylobacter (4 uitbraken).
2.24.2 Achtergrond
In Nederland bestaat de registratie van voedselgerelateerde uitbraken bij het Centrum Infectieziektebestrijding (CIb) van het (Rijksinstituut voor Volksgezondheid en Milieu) uit meldingen van ziekte door voedsel bij de NVWA en meldingen door de GGD in het kader van de meldingsplicht, op basis van de Wet publieke gezondheid. Voedsel- en omgevingsmonsters worden door de NVWA voor analyse ingestuurd naar Wageningen Food Safety Research (WFSR, (Wageningen University &Research)). De meldingen worden vervolgens samengevoegd en waar een uitbraak via beide routes is gemeld, gekoppeld tot één melding.
Sinds 2015 worden alle meldingen van uitbraken (d.w.z. twee of meer zieken) bij de NVWA ingevoerd in Osiris, ongeacht of naar aanleiding van deze meldingen een inspectie en/of monstername heeft plaatsgevonden. Meldingen betreffende enkele ziektegevallen en anonieme meldingen, uitgezonderd meldingen van grote uitbraken, worden sindsdien niet meer ingevoerd. Het aantal geregistreerde voedselgerelateerde uitbraken wordt jaarlijks gerapporteerd door het RIVM-CIb; onderstaande cijfers zijn uit dit rapport afkomstig. Deze getallen zijn een onderschatting, omdat niet iedere zieke de NVWA informeert of naar de huisarts gaat, waarbij deze laatste in veel gevallen geen meldingsplicht heeft.
2.24.3 Uitbraken in 2025
De NVWA registreerde in 2025 1.129 meldingen van voedselgerelateerde uitbraken waarbij 4.218 mensen ziek werden. Daarnaast kwamen via de meldingsplicht/GGD’en 21 meldingen van voedselgerelateerde uitbraken bij het RIVM-CIb binnen met in totaal 252 gerelateerde zieken. Door beide instanties samen werden 1.142 voedselgerelateerde uitbraken met 4.279 ziektegevallen geregistreerd (Figuur 2.24.1), waarbij zeven uitbraken bij beide instanties zijn gemeld. Het totaal aantal gemelde uitbraken in 2025 is daarmee, na een daling in 2023, vergelijkbaar met 2022 en 2024 (1.173-1.179 uitbraken). Het aantal daarbij behorende ziektegevallen bij NVWA en GGD (4.279 zieken) is wel lager dan in 2022 (4.505 zieken) en 2024 (5.405 zieken).
De meerderheid van de uitbraken bestond uit twee tot en met vier ziektegevallen (85%), gevolgd door uitbraken met vijf tot en met negen ziektegevallen (11%). Er waren in totaal twaalf (1,1%) grote uitbraken, met 25 of meer ziektegevallen. Bij 2,7% (31 uitbraken) van de uitbraken werd melding gemaakt van een gedetecteerde ziekteverwekker (Tabel 2.24.1). Echter, alleen bij meldingen met voldoende informatie (751 meldingen) is een NVWA inspectie uitgevoerd, en daarvan vond bij een deel monstername plaats (n=113). Bij 23 uitbraken werd een ziekteverwekker alleen bij één of meer patiënten aangetroffen, in vijf uitbraken werd een ziekteverwekker aangetoond in voedsel- en/of omgevingsmonsters en in drie uitbraken werd de ziekteverwekker in één of meer patiënten en voedsel- en/of omgevingsmonsters aangetoond.
Sinds 2006 waren norovirus, Salmonella en Campylobacter de meest aangetroffen ziekteverwekkers bij voedselgerelateerde uitbraken met tussen 2013 en 2019 norovirus (14-25 uitbraken) telkens als de meest gerapporteerde ziekteverwekker.1,2 De uitzondering vormt 2024 met maar één gemelde uitbraak met Campylobacter (Tabel 2.24.1). In 2025 werden Salmonella-uitbraken het vaakst gemeld met tien uitbraken en 161 gerapporteerde ziektegevallen plus een uitbraak waarbij Salmonella én sapovirus werd gediagnosticeerd (3 ziektegevallen). Norovirus was in zeven gemelde uitbraken (235 gerapporteerde zieken) de oorzaak en Campylobacter werd in vier uitbraken met in totaal 13 zieken gemeld. Verder waren er drie STEC-uitbraken waaronder een Duitse uitbraak, veroorzaakt door STEC O45, met een Nederlandse patiënt. Van de twee Listeria-uitbraken betrof ook één uitbraak een buitenlands cluster: een Nederlandse patiënt behoort tot een uitbraak in Frankrijk waarbij de bron herleid kon worden naar zachte kazen van een specifieke producent, dit alles op basis van WGS. De twee Shigella sonnei-uitbraken in 2025 werden via de surveillance gedetecteerd, waarbij de infecties opgelopen werden op het vliegveld van Dubai in de ene uitbraak en op Kaapverdië in de andere. Tot slot werd middels veegdoekjes rotavirus aangetoond binnen een uitbraak met 10 zieken en werd er bij de NVWA een uitbraak met twee zieken met astrovirus, inclusief een ziekenhuisopname, gemeld.
Naast deze uitbraken in 2025 waren er drie uitbraken die al in de rapportage van 2024 zijn gemeld, maar nog in 2025 doorliepen. Dit betroffen een Salmonella Enteritidis-uitbraak gerelateerd aan eieren, een S. Typhimurium-uitbraak mogelijk gerelateerd aan gedroogde worst en de hepatitis A-uitbraak gerelateerd aan diepvries blauwe bessen. Aangezien deze uitbraken in 2024 zijn gestart, tellen ze in dat jaar mee.
Tabel 2.24.1 Aantal uitbraken, geregistreerd door de NVWA en/of de GGD’en bij het RIVM-CIb, naar ziekteverwekker in voedsel-/omgevingsmonsters en/of patiënten, 2021-2025
| Jaar | 2021 | 2022 | 2023 | 2024 | 2025 |
|---|---|---|---|---|---|
| B. cereus* | 0 | 0 | 0 | 0 | 0 |
| S. aureus* | 0 | 0 | 0 | 0 | 0 |
| C. perfringens* | 0 | 0 | 0 | 0 | 0 |
| Campylobacter spp. | 5 | 5 | 7 | 1 | 4 |
| L. monocytogenes | 2 | 1 | 0 | 1 | 2 |
| Salmonella spp. | 11 | 7 | 14 | 9 | 10 |
| Shigella spp. | 0 | 1 | 0 | 0 | 2 |
| STEC/EHEC | 1 | 3 | 1 | 1 | 3 |
| Yersinia spp. | 1 | 0 | 0 | 0 | 0 |
| Astrovirus | 0 | 0 | 0 | 0 | 1 |
| Hepatitis A-virus | 2 | 0 | 0 | 3 | 0 |
| Norovirus | 6 | 4 | 7 | 12 | 7 |
| Rotavirus | 0 | 0 | 1 | 0 | 1 |
| Twee pathogenen | 0 | 3 | 2 | 3 | 1 |
| Totaal bekend | 28 | 24 | 32 | 31 | 31 |
| % bekend | 3,3% | 2,0% | 3,5% | 2,6% | 2,7% |
| Onbekend | 814 | 1149 | 880 | 1148 | 1111 |
| Totaal | 842 | 1173 | 911 | 1179 | 1142 |
Figuur 2.24.1 Aantal meldingen van voedselgerelateerde uitbraken en aantal zieken per jaar, geregistreerd door de NVWA bij het RIVM-CIb, 2016-2025
Literatuur:
- Friesema I.H.M., et al., Voedselgerelateerde uitbraken in Nederland, 2006-2017 (pdf). (Rijksinstituut voor Volksgezondheid en Milieu) rapport 2019-0059
- Friesema I.H.M., et al., Registratie voedselgerelateerde uitbraken in Nederland, 2018-2010 (pdf). RIVM rapport 2020-0131
2.25 Yersiniose
2.25.1 Hoofdpunten
- In 2025 zijn er 277 yersiniose patiënten gemeld in ISIS-AR. Dat is minder dan in 2024 (n=329), maar hoger dan in 2017-2019 vóór de COVID-19-pandemie (gemiddeld 184, spreiding: 155-215). Het merendeel (90%) betrof Y. enterocolitica.
- In 2025 werden in totaal 46 clusters waargenomen in de kiemsurveillance bij het (Rijksinstituut voor Volksgezondheid en Milieu). Het grootste cluster bestond uit 18 patiënten.
- Risico op Y. enterocolitica besmetting in varkensvleesproducten is beperkt door wettelijk voorgeschreven hygiënemaatregelen en aanvullende bewerkingsstappen vóór consumptie.
- Royal (Gezondheidsdienst voor Dieren) (Gezondheidsdienst voor Dieren) rapporteerde in 2025 acht infecties met Yersinia bij landbouwhuisdieren. Dit is vergelijkbaar met voorgaande jaren.
- In 2025 meldde VMDC (Veterinair Microbiologisch Diagnostisch Centrum) in totaal twaalf Yersinia-infecties, vastgesteld bij zoogdieren.
2.25.2 Achtergrondinformatie
Yersiniose bij mensen wordt in Nederland voornamelijk veroorzaakt door Yersinia enterocolitica, welke meestal via voedsel bij de mens terecht komt. Infectie kan ontsteking van het darmslijmvlies veroorzaken, leidend tot symptomen zoals koorts, buikpijn, en diarree (al dan niet met bloed). Zeldzamer zijn pseudoappendicitis en immuungemedieerde gewrichtsklachten en de huidaandoening erythema nodosum. Y. enterocolitica is een zoönose die normaal voorkomt bij varkens en knaagdieren, maar ook in grond en water. Y. pseudotuberculosis kan bij vrijwel alle zoogdieren en bij veel vogels pseudotuberculose veroorzaken. Infecties bij de mens zijn relatief zeldzaam. Infecties met Y. pestis, wat verwekker is van de pest, maken geen onderdeel uit van dit hoofdstuk.
2.25.3 Yersiniose bij mensen
In 2025 werden er 277 yersiniose patiënten gemeld in ISIS-AR. Dat is minder dan in 2024 (n=329), maar hoger dan in 2017-2019 vóór de COVID-19-pandemie (gemiddeld 184, spreiding: 155-215) (Figuur 2.25.1). In 2025 betrof 90% Y. enterocolitica, 3% Y. pseudotuberculosis, 1% Y. frederiksenii, 3% overige species en 3% was niet verder getypeerd.
In maart 2022 is een kiemsurveillance voor Yersinia opgestart, waarbij laboratoria in Nederland werden verzocht om humane Yersinia isolaten op te sturen naar het RIVM voor typering middels whole genome sequencing (WGS). In 2025 zijn er isolaten van in totaal 205 patiënten ontvangen en gesequenced bij het RIVM. Dit is vrijwel gelijk aan het aantal in 2023 en 2024, met isolaten van respectievelijk 196 en 199 patiënten. In 2022, toen de kiemsurveillance in de loop van het jaar werd opgestart, werden isolaten van 110 patiënten ontvangen. In 2025 hadden patiënten een mediane leeftijd van 35 jaar (spreiding 0 tot 93). De patiënten betroffen 96 (47%) mannen en 109 (53%) vrouwen. Het overgrote deel van de isolaten betrof het species Y. enterocolitica (n=158, 77%). Twintig isolaten (10%) betrof andere Yersinia species en van 27 isolaten (13%) kon het species niet bepaald worden.
Om groepen patiënten te identificeren met identieke isolaten (wat duidt op een gemeenschappelijke bron) wordt clusteranalyse uitgevoerd met behulp van core genome multi-locus sequence typing (cgMLST). Bij 76 patiënten (37%) in 2025 clusterde het isolaat met ten minste één ander isolaat uit 2025 of eerdere jaren. De totale clustergrootte wordt bepaald op basis van het aantal patiënten binnen een cluster in de periode 2022-2025. Van de 46 clusters waartoe patiënten in 2025 behoorden waren er 25 met twee patiënten, 11 met drie patiënten, vijf met vier patiënten, twee met 6 patiënten en één met 18 patiënten. Het grootste cluster met 18 patiënten werd voor het eerst gezien in 2022 (n=2) en 2023 (n=1), maar vooral in 2025 (n=15), met name in de periode juni-augustus. Op het moment dat uitbraakonderzoek opgestart werd, kwam het cluster uit zichzelf ten einde. Binnen de Yersinia-kiemsurveillance wordt relatief weinig clustering waargenomen. De gedetecteerde clusters zijn bovendien klein, wat wijst op een diversiteit aan besmettingsbronnen, maar kunnen mogelijk ook het gevolg zijn van de beperkte dekkingsgraad van de surveillance, hoewel deze niet exact bekend is.
2.25.4 Yersinia in voedsel
Overdracht van Yersinia naar de mens vindt voornamelijk plaats via gecontamineerd voedsel, en incidenteel via water. Voor Y. enterocolitica is de consumptie van rauw of onvoldoende gekookt varkensvlees een belangrijke transmissieroute, maar uitbraken geassocieerd met andere voedselbronnen, zoals verse slasoorten, zijn ook beschreven.1,2 Daarbij is Y. enterocolitica koudetolerant: het kan overleven en vermeerderen in voeding bewaard onder gekoelde omstandigheden.3 Van zowel Y. enterocolitica als Y. pseudotuberculosis is bewezen dat transmissie naar de mens kan plaatsvinden via consumptie van melk en dat deze bacteriën in de Europese unie voorkomen bij verscheidende soorten melk-producerende dieren. Door de Europese Autoriteit voor voedselveiligheid (EFSA) worden beide species echter niet tot de belangrijke gevaren van het consumeren van rauwe melk gerekend vanwege de lage incidentie danwel de ernst van de ziekte.4 Gegevens over de overdracht van Y. pseudotuberculosis zijn verder beperkt; in de literatuur zijn onder andere uitbraken beschreven die geassocieerd waren met het consumeren van ijsbergsla en wortelen.5 Een uitgebreide ketenrisicobeoordeling van roodvlees en grofwild door Bureau Risicobeoordeling van de (Nederlandse Voedsel- en Warenautoriteit) (BuRO) in 2024 geeft inzicht in het voorkomen van Yersinia spp. in de keten en besmettingsroutes naar de mens.6
In opdracht van Bureau Risicobeoordeling van de NVWA is door Wageningen Food Safety Research (WFSR) een analyse uitgevoerd met als doel de prevalentie van Y. enterocolitica op vleesvarkensbedrijven in te schatten.7 In 2019 en 2020 werden 134 gepoolde varkensmestmonsters verzameld op verschillende vleesvarkensbedrijven in Nederland. Deze monsters zijn retrospectief geanalyseerd op de aanwezigheid van genetisch materiaal van het species Y. enterocolitica en van humaan pathogene stammen van Y. enterocolitica. In 31,3% van de gescreende monsters werd Y. enterocolitica aangetoond en humaan pathogene Y. enterocolitica werd in 14,9% van de monsters aangetoond. Vanwege het gebruik van PCR is het niet te zeggen of de bacterie in levende vorm aanwezig was. Het gebruik van gepoolde varkensmestmonsters in dit onderzoek weerspiegelt de prevalentie op bedrijfsniveau en niet op dierniveau. Tevens staat deze prevalentie niet gelijk aan het vóórkomen van Y. enterocolitica in varkensvleesproducten uit de detailhandel, dankzij de wettelijk voorgeschreven hygiënemaatregelen die gehanteerd worden tijdens het slachtingsproces. Aanvullende bewerkingsstappen (drogen, fermenteren, verhitten) voor consumptie zorgen voor verdere eliminatie van eventueel aanwezige Yersinia.
In 2023 is binnen het voedselmonitoringsprogramma van de NVWA gestart met de monitoring van humaan pathogene Y. enterocolitica in vers varkensvlees en rauw te consumeren groenten. Bemonstering vond plaats bij producten in de detailhandel onder verantwoordelijkheid van de NVWA en analyse werd verricht door WFSR. In 2025 zijn er 258 monsters vers varkensvleesproducten onderzocht, waarbij in 1 monster een Y. enterocolitica werd gevonden. In geen van de monsters varkensvlees producten, waaronder 38 Fuet en 8 gedroogde ham, werd een verdacht humaan pathogeen Y. enterocolitica isolaat aangetoond. Bij 97 onderzochte groenteproducten werd één verdacht humaan pathogeen Y. entercolitica geïsoleerd uit bloemkool. In 33 monsters fruit werd geen Yersinia aangetoond.
2.25.5 Yersinia bij dieren
Dieren zijn meestal asymptomatische dragers van Yersinia species, maar kunnen incidenteel ziek worden en bacteriën uitscheiden. Yersinia bij zoogdieren is meldingsplichtig.8 Dierhouders, dierenartsen en onderzoeksinstellingen hebben de verplichting om infecties met Yersinia bij zoogdieren te melden (zie 2.2 Meldingsplichtige zoönosen). In het geval van Yersinia-infecties bij dieren in een instelling met een publieke functie, zoals zelfzuivelaars of een kinderboerderij, of bij mogelijk gerelateerde humane gevallen, wordt zo spoedig mogelijk een melding gemaakt bij het Landelijk meldpunt dierziekten van de NVWA. Zo nodig kunnen er maatregelen worden getroffen om het risico te minimaliseren. In 2025 werden hier drie meldingen van gedaan bij het NVWA Incidenten- en Crisiscentrum (NVIC). In geen van de drie gevallen was het noodzakelijk om matregelen te nemen.
In het kader van surveillance melden verschillende laboratoria in Nederland op regelmatige basis het aantal Yersinia-infecties bij zoogdieren. Royal GD (Gezondheidsdienst voor Dieren) rapporteerde in 2025 acht infecties met Yersinia bij landbouwhuisdieren. Het betrof twee gevallen van Y. paratuberculosis bij geiten en drie bij schapen, twee gevallen van Yersinia spp.bij varkens en één geval van Y. enterocolitica bij runderen. Dit is vergelijkbaar met voorgaande jaren. In Tabel 2.26.1 zijn de data uit 2025 per diersoort weergeven. Royal GD rapporteert infecties met Yersinia ook in de Monitoring Diergezondheid.
Naast de gegevens van Royal GD, rapporteert ook VMDC (Veterinair Microbiologisch Diagnostisch Centrum) Yersinia-infecties. In 2025 meldde VMDC in totaal twaalf Yersinia-infecties vastgesteld bij zoogdieren. Het betrof twee gevallen van Y. enterocolitica bij muizen, acht bij apen, een bij een wasbeer en een bij een tijger. Daarnaast werd een geval van Yersinia spp. vastgesteld bij een aap en een geval van Y. pseudotuberculosis bij apen. Deze meldingen vormen een waardevolle aanvulling op het overzicht van infecties met Yersinia bij dieren zoals weergegeven in Tabel 2.25.1.
In het kader van het gezamenlijke RIVM-NVWA-WFSR project ‘Surveillance Landbouwhuisdieren’ zijn in 2024 -2025 bedrijven met vleesvarkens bezocht. Hierbij is op 29/202 (14,4%) van de bezochte vleesvarken bedrijven Yersinia aangetoond in mestmonsters. Het betrof in 27 gevallen verdachte humaan pathogene Y. enterocolitica en in twee gevallen Y. pseudotuberculosis.
Figuur 2.25.1 Aantal humane gevallen van infecties met Yersinia spp. op basis van ISIS-AR, 2016-2025
Tabel 2.25.1 Infecties met Yersinia in landbouwhuisdieren in 2023: aantal positieve bevindingen/totaal aantal onderzochte dieren door Royal (Gezondheidsdienst voor Dieren).
| Diersoort | Positief/totaal aantal monsters |
|---|---|
| Schapena | 3/396 |
| Geitena | 2/369 |
| Varkensa | 2/1797 |
| Runderena | 1/2339 |
| Muizenb | 2/17 |
| Tijgersb | 1/8 |
| Wasberenb | 1/10 |
| Apenb | 8/945 |
Literatuur:
- MacDonald E., et al. Yersinia enterocolitica outbreak associated with ready-to-eat salad mix, Norway, 2011. Emerg Infect Dis. 2012;18(9):1496–9
- MacDonald E., et al. National outbreak of Yersinia enterocolitica infections in military and civilian populations associated with consumption of mixed salad, Norway, 2014. Euro Surveill. 2016;21(34).
- Palonen E., et al. Adaptation of enteropathogenic Yersinia to low growth temperature. Crit Rev Microbiol. 2010;36(1):54–67
- European Food Safety Authority. Scientific Opinion on the public health risks related to the consumption of raw drinking milk. EFSA Journal. 2015;13(1)
- Rimhanen-Finne R., et al. Yersinia pseudotuberculosis causing a large outbreak associated with carrots in Finland, 2006. Epidemiol Infect. 2009;137(3):342–7
- BuRO. Advies van BuRO over de risicobeoordeling roodvlees en grofwildketen. Utrecht: Nederlandse Voedsel- en Warenautoriteit - Bureau Risicobeoordeling & onderzoek; 2024
- Castelijn G. A. A. et al, Surveillance van Yersinia enterocolitica op vleesvarkensbedrijven in Nederland. Wageningen: Wageningen Food Safety Research; 2022
- (Nederlandse Voedsel- en Warenautoriteit). Melden dierziekte. Utrecht: Nederlandse Voedsel- en Warenautoriteit (NVWA).